Herpesによって起こる①遺伝子の機能を失わせる突然変異②遺伝子の機能を変化させる突然変異③タンパク質の過剰生産を起こす突然変異を起こすことで癌が起きます。それぞれの発がんが起こるメカニズムを説明しましょう。
herpesが免疫系から回避する方法とは何でしょうか?
ヘルペスウイルスは、抗原提示の阻害、免疫センサーの無効化、神経節への潜伏という主な方法で免疫から逃れます。血管やリンパの部位でも、免疫細胞の受容体を利用して攻撃を抑え、身を隠します。免疫を避ける主な仕組み警報のブロック:ウイルスが持つ特定のたんぱく質(VP22など)が、体の免疫センサー(AIM2インフラマソームなど)の働きを邪魔して炎症や警報の発生を防ぎます。目印の隠蔽:感染した細胞の表面にある「ウイルスがいるよ」と知らせる目印(MHCクラスI分子など)を隠したり減らしたりして、キラーT細胞に見つからないようにします。受容体の悪用:免疫細胞の表面にある目印(PILRαなど)に結合することで、逆に免疫の働きにブレーキをかけさせ、自分を攻撃させずに感染します。血管やリンパ液の中での逃走血流・リンパの利用:ウイルスそのものが血流やリンパ液に乗って移動する際も、免疫細胞の表面受容体をくぐり抜けることで、異物としてすぐに破壊されるのを免れます。最終的な隠れ家:免疫の監視が届きにくい神経細胞(神経節)の奥深くに移動し、じっと隠れる(潜伏感染)ことだけではなく感染細胞の核に潜んで免疫が低下したときだけ増殖分裂をはじめ細胞外に出て新たなる細胞に感染します。
全身の神経節や細胞の核に潜伏してから免疫低下の際に皮膚のみならず様々な組織の細胞に感染して再発する時の詳しい状況とは?
神経節や細胞の核に潜伏してから免疫低下の際に皮膚のみならず様々な組織の細胞に感染して再発する時の詳しい状況を何でしょうか?ヘルペスウイルスが細胞の核から目覚め、皮膚やその他の臓器・組織へ広がっていく再発プロセス(再活性化)は、まるで「ロックダウンの解除」と「ウイルスの大移動」のような精密なステップで行われます。免疫低下時に、ウイルスがどのように組織に侵入していくのか、その詳しい状況を4つの段階に分けて解説します。1. 脱獄:核内での「ブレーキ解除」普段、神経細胞の核内にあるウイルスのDNAは、LAT(潜伏感染関連転写物)と呼ばれる分子によって厳重に眠らされています。トリガー:ストレス、疲労、発熱、免疫抑制剤の使用などで体内の「ストレスシグナル(角質細胞や神経の負荷)」が高まります。ブレーキの解除:このシグナルが神経細胞に伝わると、ウイルスの眠りを維持していたホスト細胞のブロック機能が外れます。ウイルスが「増殖のスイッチ(VP16やICP0などのタンパク質)」を急激にオンにして、核内で大量のコピー(複製)を始めます。2. 出荷:神経の線路を使った「順方向輸送」神経細胞の核で生まれた大量のウイルス(カプシド)は、神経の長い繊維(軸索)を通って末梢組織(皮膚や内臓)へと向かいます。微小管のハイジャック:細胞内のトランスポート用レールである「微小管」をウイルスが乗っ取ります。モーターの駆動:今度は「キネシン」という順方向の分子モーターに自らを結合させ、神経の先端(シナプス)に向かって時速数センチメートルというウイルスにとっては凄まじいスピードで「順方向輸送(Anterograde transport)」されます。3. 着弾:皮膚への感染(通常ルート)神経の末端に到達したウイルスは、そこから外へと放出され、最初に触れる周辺細胞に感染します。上皮細胞の破壊(水ぶくれ):ウイルスが皮膚や粘膜の上皮細胞を次々と乗っ取り、細胞を破裂させて(融解感染)増殖します。これが、再発時に見られるピリピリした痛みや水ぶくれ、潰瘍の正体です。4. 拡散:様々な組織(内臓・脳など)への感染(重症化ルート)通常は皮膚で食い止められますが、著しい免疫低下(抗がん剤治療、HIV感染、高齢、免疫抑制剤の使用など)が起きている場合、ウイルスは皮膚に留まらず、あらゆるルートを開拓して全身の組織細胞へ牙をむきます。① 神経系を逆走・横断するケース(脳炎・髄膜炎)末梢の神経だけでなく、中枢神経(脳や脊髄)へとつながるルートを逆走したり、隣り合う別の神経節へと感染を広げたりします。脳細胞への侵入:大脳の側頭葉などに入り込むと、脳細胞を破壊してヘルペス脳炎を引き起こし、意識障害やけいれんを誘発します。② 血流・リンパ液を介して遠くの臓器に届くケース(内臓ヘルペス)通常は血液中にウイルスが出ることは稀ですが、免疫の監視が完全に機能していないと、ウイルスが血管内皮細胞やリンパ管を突破して流出します。肝臓(ヘルペス肝炎):血流に乗って肝臓に漂着。肝細胞に急速に感染・壊死させ、劇症肝炎(急性肝不全)を引き起こすことがあります。肺(ヘルペス肺炎):呼吸器の粘膜組織の細胞に感染し、重篤な呼吸不全や肺炎を起こします。消化管(食道炎・胃炎):食道や胃の粘膜細胞を直撃し、広範囲な潰瘍を作ります。💡 なぜ皮膚以外にも広がるのか?単純ヘルペスや帯状疱疹ウイルスは、特定の細胞だけでなく、人間を含む動物の「ヘパラン硫酸」と呼ばれる、ほぼすべての細胞の表面にある糖鎖を足がかりにして細胞内に侵入できるためです。つまり、免疫という「防衛壁」さえ崩れてしまえば、体中のどの組織の細胞でも感染・増殖できる「広範な組織親和性」を持っています。
ウイルスが組織の細胞をヘルペスビリオン(子供)を増殖分裂の際に増やすときに細胞を破壊して細胞外に出ていくときの免疫細胞(マクロファージやT細胞)との攻防しながら全身に広がってしまう状態は?それを防ぐための治療(点滴治療など)や特定の病態である帯状疱疹による内臓麻痺や神経痛の機序について?
- 免疫細胞との攻防と全身への拡大病態ヘルペスウイルスは細胞を破壊しながら「子供(ビリオン)」を放出します。この時、現場では激しい戦闘が起きています。局所での激しい攻防マクロファージの初動対応:ウイルスに破壊された細胞からSOS信号(炎症性サイトカイン)が出ると、マクロファージが現場に急行します。ウイルスを直接貪食(丸呑み)して分解し、同時に周囲に「敵の襲来」を伝えます。T細胞による狙撃:ヘルパーT細胞(CD4+)が前線に指示を出し、キラーT細胞(CD8+)がウイルスに乗っ取られた細胞を外側から破壊して、ウイルス工場を強制閉鎖します。ウイルスの反撃(細胞間伝播):ウイルスは賢く、細胞の外(体液中)に出ると抗体に見つかってしまうため、隣り合う細胞の膜同士を融合させて、外に出ずに直接隣の細胞へと潜り込みます(Cell-to-Cell transmission)。これにより、マクロファージや抗体の攻撃を回避します。全身へ広がってしまう病態:播種性(はしゅせい)ヘルペス感染症免疫抑制が極めて強い患者(NK細胞やT細胞の機能不全、抗がん剤治療中など)では、この攻防に免疫側が完全敗北します。局所で抑え込めなくなったウイルスが、大量に血管内皮細胞を破壊して血流に流れ込みます(ウイルス血症)。血流に乗ったウイルスが全身のあらゆる臓器(肝臓、肺、脳、副腎など)の細胞に同時に着弾し、各臓器で一斉に細胞破壊(融解感染)を始めます。これを播種性ヘルペス(または播種性帯状疱疹)と呼び、多臓器不全やDIC(播種性血管内凝固症候群)を引き起こす、極めて致死率の高い重篤な病態です。2. 全身拡大を防ぐための点滴治療ウイルス血症や全身への拡大が疑われる場合、あるいはそのリスクが高い場合は、一刻も早い抗ウイルス薬の静脈内点滴投与が必要です。主な薬剤:アシクロビル(Acyclovir)の点滴静注が第一選択となります。巨細胞封入体症(CMV)などの場合はガンシクロビルなども使われます。治療の仕組み:この薬は、「ウイルスに感染した細胞の中でのみ」強力な毒性に変化するという特殊な性質を持っています。ウイルスの酵素(チミジンキナーゼ)によって薬が活性化され、ウイルスのDNA複製をピンポイントで停止させます。正常な細胞にはほとんど害を与えずに、ウイルスの爆発的な増殖(子供の量産)をストップできます。治療のタイミング:ウイルスが細胞を破壊して血流に乗り切る前、すなわち発疹や痛みが出てから72時間以内(理想的には早ければ早いほどよい)に開始することで、臓器へのダメージや後述する神経痛の重症化を劇的に防ぐことができます。3. 帯状疱疹による「内臓麻痺」と「神経痛」の機序帯状疱疹(水痘・帯状疱疹ウイルス:VZV)は、神経の深い部分を破壊するため、特有の深刻な症状を引き起こします。① 内臓麻痺(運動神経麻痺)の機序通常、帯状疱疹は「痛み」や「痒み」を感じる感覚神経を通って皮膚に出てきます。しかし、炎症が激しすぎると、そのすぐ隣を走っている「運動神経」や「自律神経」にまで炎症が飛び火(波及)します。運動麻痺(筋力低下):顔面神経に飛び火すると顔面神経麻痺(ラムゼイ・ハント症候群)に、お腹や背中の運動神経に波及すると、腹壁の筋肉が麻痺してその部分だけぽっこりお腹が膨らむ「腹壁瘢痕ヘルニア」のようになります。内臓麻痺(排尿・排便障害):仙骨(お尻の骨)の神経節でウイルスが再活性化すると、膀胱や直腸をコントロールしている自律神経(骨盤内臓神経など)が破壊されます。これにより、尿が出なくなる(尿閉)、便秘になる、あるいは腸が動かなくなる「麻痺性イレウス(腸閉塞)」を起こします。② 帯状疱疹後神経痛(PHN)の機序皮膚の水ぶくれが治った後も、何ヶ月・何年も激しい痛みが続く病態を帯状疱疹後神経痛(PHN)と呼びます。これはウイルスそのものが暴れているのではなく、ウイルスによって神経回路が「物理的に焼き切られた」残骸のバグです。神経の異常興奮:ウイルスが神経細胞を激しく破壊した結果、剥き出しになった神経の断端が、ウイルスのいなくなった後も「ずっと痛みの電気信号」を脳に送り続ける暴走状態になります。痛みの混線(アロディニア):本来なら「触られただけ」という優しい感覚を伝える神経と、「痛い」を伝える神経の回路が混線します。その結果、服が擦れたり、風が当たったりしただけで、脳が「激痛」と勘違いして激しい激痛が走るようになります。
アシクロビル点滴時の副作用(腎機能への影響など)や注意点?帯状疱疹後神経痛(Post-herpetic neuralgia 略 PHN)になってしまった場合の特殊な痛み止め(プレガバリンなど)?ペインクリニックでの治療法?ラムゼイ・ハント症候群(顔面麻痺)のステロイド併用療法について?
1. アシクロビル点滴の副作用と注意点:もっとも警戒すべき「腎障害」アシクロビルはウイルス増殖を抑える非常に優れた薬ですが、点滴で高濃度に投与する際は「急性腎障害(結晶性腎症)」への厳重な警戒が必要です。腎障害のメカニズム:アシクロビルは、ほとんど代謝されずに尿から排泄されます。尿の量が少なかったり、薬の濃度が急に高くなったりすると、腎臓の尿細管という細い管の中で薬が結晶化(針状の結晶)して詰まってしまい、腎機能を急速に低下させます。予防と注意点(水分補給が命):これを防ぐため、点滴の前後や最中には、十分な水分を補給(輸液や飲水)して尿量をしっかり確保することが絶対に必要です。また、高齢者やもともと腎機能が落ちている人の場合は、腎機能(クレアチニンクリアランス)の数値に合わせて「薬の量を減らす」「投与間隔を空ける」という綿密な調節を行います。その他の副作用:まれに脳に作用して、意識が朦朧としたり、おかしな発言をしたり、手が震えたりする「精神神経症状(アシクロビル脳症)」が出ることがあり、これも腎機能が低下している人に起きやすい傾向があります。
2. 帯状疱疹後神経痛(Post-herpetic neuralgia 略PHN)に使う特殊な痛み止めロキソニンやカロナールなどの一般的な消炎鎮痛剤は、炎症による痛みに効くものであり、焼き切れて傷ついた神経の痛み(神経障害性疼痛)にはほぼ効きません。
そのため、以下の特殊な薬が第一選択として使われます。カルシウムチャネルα2δリガンド(プレガバリン、ミロガバリン):神経細胞のカルシウムチャンネルに結合し、「痛みの電気信号(興奮性神経伝達物質)」の過剰な放出を根本からブロックする薬です。PHNの痛みを強力に抑えますが、飲み始めに「強い眠気」や「ふらつき」「めまい」が出やすいため、少ない量から徐々に増やしていくのが鉄則です。弱オピオイド(トラマドールなど):脳や脊髄のオピオイド受容体に作用して、痛みの伝達を麻痺させる医療用麻薬に準じた成分です。プレガバリンなどで取り切れない激しい痛みに併用されます。抗うつ薬(アミトリプチンやデュロキセチンなど):うつ病の治療ではなく、脳が本来持っている「痛みを脳で自ら和らげるシステム(下行性疼痛調節系)」を活性化させる目的で使用されます。
下行性疼痛調節系とは脳が「痛みを和らげるブレーキ」をかける体内の仕組みです。アロディニアやPHN(帯状疱疹後神経痛)のような慢性的な痛みは、このブレーキがうまく利かなくなることで悪化します。下行性疼痛調節系の仕組みと役割通常、痛みは体から脳へ「上向き(上行性)」に伝わります。これに対して、脳から脊髄へ「下向き(下行性)」に痛みを抑える指令を送るルートが下行性疼痛調節系です。天然の痛み止め: 脳からセロトニンやノルアドレナリンなどの神経伝達物質が放出されます。信号の遮断: 放出された物質が、脊髄で痛みの信号をブロックします。脳の防衛反応: 本来は、強い痛みでパニックにならないよう脳が自動で痛みを薄めるシステムです。下行性疼痛調節系の機能が低下するとどうなる?ストレス、不安、睡眠不足、あるいは長引く強い痛み(PHNなど)によってこのブレーキシステムが疲弊し、機能しなくなります。痛みの増幅: ブレーキが利かないため、小さな痛みの信号がそのまま脳に届きます。アロディニア(いつうしょうの誘発: 触っただけの軽い刺激も、脳で激痛として処理されてしまいます。このシステムを元気にする(ブレーキを利かせる)ためには、抗うつ薬(SNRIなど)を使ってセロトニンなどを増やす薬物治療や、適度な運動、リラクゼーションなどが有効とされています。
- ペインクリニックでの専門的な治療法(ブロック注射など)薬の内服だけではどうしても耐えられない激痛や、痛みの混線(服が擦れただけで激痛が走るアロディニア日本語訳は異痛症(いつうしょう))がある場合、ペインクリニックで専門的な処置を行います。アロディニアとはアロディニア(Allodynia)は、通常では痛みを感じないような軽い刺激(擦れる、触れる、風が当たるなど)を、激しい痛みとして感じてしまう状態のことです。日本語では「異痛症(いつうしょう)」とも呼ばれます。先ほどの「PHN(帯状疱疹後神経痛)」の代表的な症状でもあります。神経ブロック注射:過敏になっている神経の根本や周辺に、局所麻酔薬(時には炎症を抑えるステロイドを少量混ぜる)を直接注射します。一時的に神経の電気信号を完全にシャットダウンすることで、「痛みの悪循環(神経の過剰興奮)」を断ち切り、血流を改善して神経の修復を促します。急性期に行うとPHNへの移行率を下げるとされています。硬膜外ブロック:背中から脊髄のすぐ外側(硬膜外腔)に細いチューブを入れ、麻酔薬を注入して広範囲の神経の興奮を鎮めます。特にお腹や足などの激しい痛みに効果的です。その他の先進治療(イオン導入・脊髄刺激電極):局所麻酔薬や医療用カプサイシンを皮膚から微弱な電流で染み込ませる治療や、どうしても治らない難治性のPHNに対しては、背骨の中に細い電極を植え込んで微弱な電流を流し、痛みを脳に伝わりにくくする「脊髄刺激療法(SCS)」が検討されることもあります。カプサイシンとは唐辛子の辛味成分であり、アロディニアやPHN(帯状疱疹後神経痛)の痛みを抑える外用薬(塗り薬・貼り薬)として医療分野で広く活用されています。「辛い成分を塗ると余計に痛くなりそう」と感じるかもしれませんが、神経の仕組みを利用した非常に理にかなった治療法です。
カプサイシンの痛みを抑えるメカニズムカプサイシンは、皮膚にある熱や痛みを感知するセンサー(TRPV1受容体)に結合します。
TRPV1 (Transient Receptor Potential Vanilloid 1)受容体とは?
TRPV1受容体の英語、日本語訳、および意味は以下の通りです。
1. 英語と日本語訳英語(略称): TRPV1(トリップ・ブイワン)英語(正式名称): Transient Receptor Potential Vanilloid 1日本語訳:一過性受容体電位バニロイド1(直訳)カプサイシン受容体(一般的な別名)バニロイド受容体1(一般的な別名)【名前の由来】「Vanilloid(バニロイド)」とは、バニラ豆の成分に似た化学構造(バニリル基)を持つ物質の総称です。トウガラシのカプサイシンもこのバニロイドの一種であるため、この名前がついています。
2. 意味(どのようなものか)?TRPV1受容体とは、私たちの感覚神経の先端に存在する「熱」と「痛み」を感知するセンサー(イオンチャネル型タンパク質)のことです。2021年のノーベル生理学・医学賞は、このTRPV1を発見・同定したデヴィッド・ジュリアス博士らに贈られました。
TRPV1の主な特徴と働く条件TRPV1は、主に以下の3つの刺激が加わるとセンサーのゲート(チャネル)が開き、脳へ「痛い!熱い!」という電気信号を送ります。43℃以上の熱人間が「アチッ!火傷する!」と感じる危険な温度のボーダーラインです。カプサイシン(トウガラシの成分)カプサイシンがこのセンサーに結合すると、温度が43℃に達していなくても、脳は「43℃以上の熱を浴びて火傷している」と完全に勘違いします。激辛料理を食べたときに口の中が熱く、痛く感じるのはこのためです。酸性環境(pH 5.9以下)体が炎症を起こしたり組織が傷ついたりすると、その場所が酸性に傾きます。TRPV1はこれを感知して痛みを強めます。
炎症が起こるとその炎症の周辺は何故酸性になるのですか?
炎症が起こった場所の周辺が酸性(pHが低下した状態)になる最大の理由は、局所的な「酸素不足」と、免疫細胞の「大食い(エネルギー大量消費)」によって乳酸や水素イオンが大量に作られるからです。私たちの体は普段、弱アルカリ性(pH 7.4前後)に保たれていますが、炎症組織では pH 5.5〜6.0 程度まで低下することがあります。この現象が起きるメカニズムを3つのステップで分かりやすく解説します。
1. 血管の圧迫による「酸素不足(低酸素)」炎症が起きると、体を守るために血流が増えてその場所が腫れ上がります(発赤・腫脹)。しかし、組織が激しく腫れると周辺の細い血管がギューッと圧迫されてしまい、一時的に十分な酸素が届かない状態(低酸素状態)に陥ります。
2. 免疫細胞の「解糖系(エネルギー生産)」へのシフト酸素が足りなくなると、細胞は酸素を使わずにエネルギーを作る緊急モード(解糖系)に切り替わります。さらに、細菌などと戦うために集まってきた白血球やマクロファージなどの免疫細胞は、戦闘モードに入ると大量のエネルギーを消費します。このとき、酸素があってもあえて解糖系をフル稼働させて急ピッチでエネルギーを作ろうとします。
3. 乳酸と水素イオン(H+)の蓄積解糖系がフル稼働した結果、副産物として大量の「乳酸」と「水素イオン(H+)」が作られます。化学のルールとして、液体の中の水素イオン(H+)の濃度が高くなればなるほど、性質は酸性に傾きます。 血管が圧迫されていて血流の循環が悪いため、発生した酸性物質が洗い流されずにその場に溜まってしまい、周辺が酸性になります。
この「酸性化」がもたらす影響周辺が酸性になると、体には以下のような変化が起こります。痛みが強くなる(TRPV1の活性化)前述の通り、TRPV1受容体は酸性(pH 5.9以下)になるとスイッチが入るため、神経が刺激されて強い痛みを感じるようになります。免疫細胞がさらに活性化する酸性の環境は、一部の免疫細胞に対して「ここで激しい戦いが起きているぞ」と知らせるサインになり、防御反応を強めます。つまり、炎症組織が酸性になるのは、免疫細胞が全力で戦った結果の「燃えかす(代謝産物)」がその場に溜まってしまうからです。このメカニズムについて、さらに詳しく知りたいポイントはありますか?乳酸が作られる化学的な仕組み酸性になることで働く他の痛みセンサーの種類
初期の刺激: 塗った直後は、痛みの伝達物質(サブスタンスP)が一気に放出されるため、一時的に激しい熱感やピリピリとした痛みを感じます。麻痺(脱感作): 繰り返し塗ることで、伝達物質(サブスタンスP)が底をつき(枯渇)、神経の末端が刺激に対して鈍くなります。鎮痛: 結果として、脳へ痛みの信号が送られなくなり、アロディニアなどの激しい痛みが和らぎます。
脱感作(desensitization)とは、特定の刺激や抗原に対して、体が過剰に反応しないよう慣れさせる(感受性を低下させる)現象や治療法のことです。カプサイシンと関わりの深い「麻痺(まひ)」との違いや、両者がどのように結びついているのかを分かりやすく解説します。
1. 脱感作とは?脱感作には、2つの側面があり大きく分けて医学治療と神経科学の2つの意味があります。①アレルギー治療(医学):アレルギー原因物質(花粉やダニなど)を少量から体に投与し、徐々に体を慣れさせてアレルギー反応を起こさなくする治療法(アレルゲン免疫療法)です。アレルゲンに対して自然後天的免疫寛容を起こすこととと同じです。②痛みの受容(神経科学):強い刺激を繰り返し受けることで、神経の受容体が反応しなくなり、刺激(痛みや辛み)を感じにくくなる現象です。カプサイシンによる効果はこちらに該当します。
2. 脱感作と「麻痺」の関わりカプサイシンを摂取したとき、口の中が「麻痺して感覚がなくなる」ように感じることがあります。この現象の裏では、脱感作が起きることで結果的に一時的な麻痺状態が引き起こされています。そのメカニズムと関係性は以下の通りです。
【脱感作と「麻痺」のプロセス】
激辛(カプサイシン)を食べる
↓
痛みセンサー(TRPV1受容体)が激しく興奮する(脳は「熱い・痛い」と感知)
↓
刺激が強すぎるため、センサーが疲弊して閉じてしまう(=これが「脱感作」)
↓
一時的に他の痛みや温度をまったく感じなくなる(=これが「麻痺」状態)
主な違いと関係性のまとめ脱感作(原因・メカニズム)神経の細胞レベルで「センサーのスイッチがオフになり、反応しなくなる」仕組みのことです。麻痺(結果・状態)脱感作が起きた結果、「感覚が鈍くなり、何も感じられなくなっている」という私たちの主観的な状態のことです。医療への応用(鎮痛薬としての活用)この「脱感作による麻痺(鎮痛)効果」を利用して、海外ではカプサイシンが含まれる高濃度の貼り薬やクリームが、帯状疱疹後の神経痛や糖尿病性神経障害の「痛み止め」として承認され、医療現場で使われています。脱感作とは?脱感作と麻痺の関わりとは?
4. ラムゼイ・ハント症候群での「ステロイド+抗ウイルス薬」の併用療法ラムゼイ・ハント症候群は、耳の周りの帯状疱疹とともに、顔の筋肉が動かなくなる「顔面神経麻痺」や「めまい・難聴」を引き起こす非常に厄介な病気です。これには必ず高用量のステロイドと抗ウイルス薬の「同時併用」が行われます。なぜ併用するのか?:抗ウイルス薬の役割:顔面神経の奥で爆発的に増殖している水痘・帯状疱疹ウイルスそのものを叩き、これ以上の破壊を止めます。ステロイドの役割:ウイルスとの戦いによって、顔面神経はもの凄く激しい炎症を起こし、真っ赤に腫れ上がっています(浮腫)。しかし、顔面神経は「顔面神経管」という硬い骨のトンネルの中を通っているため、腫れると骨にギューギューに圧迫され、自分の腫れによって神経が物理的に窒息・壊死してしまいます。ステロイドはこの「腫れ(むくみ)」を強力に引かせ、神経の窒息死を防ぐために使われます。治療のタイムリミット:神経が一度完全に死んでしまうと、一生激しい顔面麻痺や病的共同運動(目を閉じると口が勝手に動くなど)の後遺症が残ります。そのため、発症から「3日以内」、遅くとも「7日以内」にこの2つの薬を最大量で投与し始めることが、一生を左右するほど極めて重要になります。
①Herpesによって起こる遺伝子の機能を失わせる突然変異が発がんをもたらすメカニズムとは?ヘルペスが過剰に細胞を増やさせない役割を持つ遺伝子の変異を起こすからです。
遺伝子の機能を失わせる突然変異(機能喪失変異)による発がんは、主にがん抑制遺伝子の不活化によって引き起こされます。細胞のブレーキ役や修理機能が失われることで、異常な細胞が無制限に増殖しますといわれますが誤りです。もちろんヘルペスが増殖しすぎて細胞はがん細胞のように増えることはできませんからがん細胞はどんどん減っていくのです。存在しない癌細胞がもともと増え続けることはありえないのです。
がん抑制遺伝子の不活化(ブレーキの喪失)細胞周期の制御不能: Rb遺伝子などのブレーキ役が壊れると、細胞分裂の停止シグナルが効かなくなり、細胞が絶え間なく増殖しますこともないのです。いずれにしろherpesが感染した細胞は最後はヘルペスに利用されつくして死ぬ以外にないのです。
アポトーシスの消失: p53遺伝子などが変異すると、異常細胞を自死させる仕組み(アポトーシス)が働かず、生存し続けます。DNA修復機構の破綻(ミスの蓄積)修復エラーの放置: BRCA1/2や不整合修復遺伝子(MLH1)の機能が失われると、日常的なDNAのコピーミスを直せなくなります。不整合修復遺伝子(MLH1)の不整合(ミスマッチ)とは、DNAの2本鎖の間で、正しいペア(結合)が作られていないエラー状態のことです。
ゲノムの不安定化: ヘルペスにによって核にある遺伝子の傷が修復されずに放置されるだけでなく、他の遺伝子にも次々と突然変異が積み重なりのではなくさまざまないでんしがなくなり、細胞ががん化しようがしまいが正常な細胞でなくなり死んでいきます。ゲノムの不安定化とは細胞の遺伝情報(遺伝子)が傷つき続け、遺伝子の変化や異常が次々と積み重なっていく状態のことでヘルペスが増えるために最後は細胞は生きられなくなります。通常、細胞は遺伝情報を正しく保つ仕組みを持っていますが、これがへるぺすによって壊されてしまうとゲノムが不安定になるどころかゲノムの正常な働きがなくなります。。これはがんの発生や進行に共通する最も重要な特徴の一つではなく増え続けるherpesはDNAや遺伝子を破壊し最後は細胞そのものが死滅していきす。
ゲノム不安定化の3つの主なタイプヌクレオチド(塩基)レベルの不安定化DNAの文字(A、T、G、C)のコピーミスが直せなくなる状態です。(MLH1)不整合修復遺伝子などの不整合修復遺伝子が働かないと、文字のミスマッチ(不整合)がそのまま残り、このタイプの不安定化(MSI:マイクロサテライト不安定性など)が起きます。マイクロサテライトとはゲノムDNAの中に存在する、「1〜数文字(塩基)の短い配列が何度も繰り返されている部分」のことです。サテライト=繰り返し塩基配列という意味です。
繰り返し塩基配列(サタライト)の役割とは繰り返し塩基配列(反復配列)は、染色体の構造維持、遺伝子発現の調節、および個体識別などに重要な役割を持っています。かつては「意味のないゴミ」と考えられていましたが、実際には生命活動に欠かせない多くの機能を持つことが分かっています。染色体の構造と維持セントロメアやテロメアの形成:染色体の端(テロメア)や中央部(セントロメア)に多く存在し、細胞分裂時に染色体を正確に分配する土台となります。物理的な保護:大切な遺伝情報が傷つかないよう、端のクッションや構造の維持に役立っています。遺伝子発現の調節とストレス応答スイッチ機能:転写(RNAへのコピー)の調節や、遺伝子が働くタイミングをコントロールする足場になります。ストレスへの対応:熱などのストレスを受けた際に特殊なRNAを作り出し、細胞を守る小さな工場(核内ストレス体)の形成を助けます。個体識別と進化DNA鑑定・個人識別:人によって繰り返しの回数が違うため、DNA型鑑定や法医学で個人の違いを見分ける目印に使われます。進化の原動力:配列が移動したり変化したりすることで、新しい遺伝子の誕生や生物の多様性に関わっています。
核内ストレス体とは核内ストレス体(nuclear stress bodies: nSBs)とは、細胞が高温(熱ストレス)などの環境変化にさらされた際、細胞の核内に一過的に形成される「膜のない構造体(非膜オルガネラ)」のことです。ヒトなどの霊長類特異的なストレス防御システムであり、細胞が危機を乗り越え、その後通常状態にスムーズに「回復」するために極めて重要な役割を果たしています。
染色体構造の不安定化とはDNAの長いひも(染色体)の一部が、途中でちぎれたり、別の染色体と間違えてくっついたり(転座)する状態です。染色体数の不安定化とは細胞分裂のときに染色体がうまく分配されず、本来の数(人間は46本)より多くなったり少なくなったりする状態です。
染色体の転座とは染色体の転座(Translocation)とは、2本の染色体が途中でちぎれ、そのちぎれた断片同士が間違って互いに入れ替わってくっついてしまう現象です。遺伝子の「並び順」が変わってしまう異常のことで、染色体の「構造の不安定化」の代表例です。
染色体の転座はなぜ起こるのか?
染色体の転座は、DNAが2本とも切断された際、細胞の修復メカニズムが「別の染色体の端同士」を誤って繋ぎ合わせてしまうことで起こります。細胞には傷ついたDNAを直す高度な仕組みが備わっていますが、特定の条件下でこのエラー(修復ミス)が生じます。その具体的な原因とメカニズムは以下の通りです。
1. 根本的な引き金:DNAの「2本鎖切断(DSB)」転座が始まるには、まずDNAのハシゴの両側が完全に断裂するDNA2本鎖切断(Double-Strand Break: DSB)という現象が、最低2箇所以上で起きる必要があります。この切断を引き起こす主な要因には以下があります。環境要因:放射線、紫外線、活性酸素、化学物質、ヘルペスウイルス感染などの外的なストレス。細胞内の通常反応:生殖細胞(精子や卵子)を作るときに起きる「減数分裂時の組み換え」や、免疫細胞が抗体を作るための「遺伝子再構成」の過程で、細胞自らが意図的にDNAを切断することがあります。
2. 修復のエラー(結合ミス)通常、細胞は切れた端同士を元通りに繋ぎ直します(非 homologous end joining: NHEJ などの修復経路)。しかし、同時に複数の場所でDNAが切断されていると、修復システムが「どの端とどの端が本来のペアだったか」を見失うことがあります。位置の近さ(空間的近接):細胞の核内で、たまたま物理的に近くに配置されていた異なる染色体同士の切断端が、誤って結合されやすくなります。似た配列の罠:異なる染色体間であっても、[「繰り返し塩基配列(サタライト)」]などの似た配列が存在すると、修復メカニズムが「ここが正しい結合相手だ」と勘違い(誤認)して繋いでしまうことがあります。
3. なぜ特定の時期に染色体転座が起きやすいのか?転座は人生のどの段階の細胞でも起こり得ますが、特に以下の時期に発生したものが臨床的に問題となります。配偶子(精子・卵子)の形成時 / 受精時:精子や卵子が作られる激しい細胞分裂の最中や、受精前後のデリケートな時期にエラーが起きると、生まれつき転座を持つ「先天性転座」となります。
大人の体細胞の分裂時:後天的に一部の体細胞で転座が起きると、遺伝子の働きがいじょうになり、白血病などの血液がんや固形がんの原因(後天性転座)になることがあります。転座が起きる背景には、細胞が「傷をなんとかして治そうとした結果の副産物」という側面があります。
染色体の転座と染色体の逆位の違いは何か?
染色体の転座(てんざ)と逆位(ぎゃくい)の最大の違いは、「別の染色体と入れ替わるか(転座)」、それとも「同じ染色体の中で向きがひっくり返るか(逆位)」という点です。
どちらもDNAが切断された際の修復ミス(構造異常)ですが、その変化が起きる範囲や次世代への影響の現れ方に違いがあります。
1. 構造的な違い
- 転座(Translocation):「染色体間」の異常
- 状態:2本以上の異なる染色体の間で、切れた断片が互いに入れ替わったり、結合したりします。
- 逆位(Inversion):「1本の染色体内」の異常
- 状態:同じ1本の染色体の中で2箇所が切れ、その間の断片が180度くるりとひっくり返って元の位置に戻ります。
2. 逆位の2つのタイプ(転座との対比)
逆位は、ひっくり返る部分に染色体の中心部(セントロメア)が含まれるかどうかで、さらに2つに分類されます。
- 腕内逆位(わいないぎゃくい):セントロメアを含まない片方の腕の中だけでひっくり返る。染色体の見た目の形は変わりません。
- 腕間逆位(わんかんぎゃくい):セントロメアを跨いでひっくり返る。くびれの位置が変わるため、顕微鏡で見たときに染色体の形が変わって見えます。
3. 次世代(子供)への影響の違い
どちらも遺伝情報の総量が変わらない「均衡型」であれば、本人には全く症状が出ず健康です。しかし、子どもに遺伝する際(生殖細胞を作るとき)の「不均衡型(遺伝情報の過不足)」の発生パターンに違いが出ます。
- 転座の場合:
生殖細胞が作られる際、染色体の組み合わせパターンによって、遺伝子が「完全に足りない(欠失)」または「多すぎる(重複)」という極端な不均衡が起きやすく、不妊や流産、あるいは生まれつきの障害に繋がりやすい傾向があります。 - 逆位の場合:
生殖細胞を作る過程で、ひっくり返った部分を無理に合わせようとして「逆位ループ」という輪っかを作って減数分裂を行います。このとき、腕間逆位のループ内で組み換えが起きると、遺伝子の重複や欠失を持つ精子・卵子が作られます。ただし、「腕内逆位」の場合は、エラーが起きた受精卵は育たないことが多く、結果として健康な(均衡型逆位を持つ)子どもが生まれやすいという特徴があります。
違いのまとめ
| 項目 | 転座(てんざ) | 逆位(ぎゃくい) |
| 関与する染色体 | 2本以上の異なる染色体 | 1本の同じ染色体 |
| 遺伝子の変化 | 別の染色体へ引っ越す | 同じ場所で向きが反転する |
| 染色体数の変化 | ロバートソン転座では45本に減る | 46本のまま変わらない |
| 主な次世代への影響 | 不妊・流産・転座型ダウン症など | 不妊・流産(タイプにより確率が異なる) |
「腕内逆位」の場合は、エラーが起きた受精卵は育たないことが多く、結果として健康な(均衡型逆位を持つ)子どもが生まれやすいという特徴があるのは何故ですか?なぜ「腕内逆位」だと健康な子が生まれやすいのか?腕内逆位はセントロメアを含まない逆位となります。
セントロメアを含まない逆位となる腕内逆位を持つ人が精子や卵子を作るとき、細胞分裂(減数分裂)の過程でエラーが起きると、「セントロメアを持たない染色体」と「セントロメアを2つ持つ染色体」という、極端に異常な染色体が作られます。これらが原因で、以下のような現象が起こるため、結果として健康な子どもが生まれやすくなります。受精卵が育たない(自然淘汰される):セントロメアが無い染色体は細胞分裂の時に正しく分配されず、2つある染色体は引き裂かれてボロボロになります。このような致命的なエラーを持つ精子や卵子は、受精能力を失うか、受精してもごく初期の段階で着床しなかったり、発育を停止したりします(化学流産や超初期の自然流産)。
生まれてくる子は「正常」か「均衡型(親と同じ)」になる:異常な染色体を持つ受精卵は生まれてくることができないのですが、他方、無事に妊娠・出産まで至る子どもは、確率的に以下の2パターンのどちらかになります。完全に正常な染色体 を受け継いだ子:親と同じ 均衡型逆位(過不足はないが向きだけ反転) を受け継いだ健康な子であるので、このため、腕内逆位は「不妊や初期流産」の原因にはなり得ますが、「遺伝子に過不足(不均衡)のある障害を持った子どもが生まれるリスク」自体は極めて低いという特徴があります。
一方で「腕間逆位」はどうなるのか?比較として、セントロメアを跨ぐ「腕間逆位」の場合は、エラーが起きても「セントロメアが1つだけある染色体(ただし一部が重複、一部が欠失)」が作られます。この場合、受精卵は致命的ではないためそのまま発育して生まれてくる可能性があります。結果として、生まれた子どもに先天的な症状や障害が現れる「不均衡型」のリスクが、腕内逆位よりも高くなります(ただし、9番染色体の腕間逆位など、健康に全く影響のない一般的な正常変異とみなされるものもあります)。
染色体の転座(てんざ)の種類はいくつありますか?
染色体の転座は、分類の「基準」によっていくつかの種類に分けられますが、臨床医学や遺伝学で最も一般的に使われる基準(構造の変化)では主に3つの種類に分類されます。これに加えて、遺伝情報の量に変化があるかどうかの分類(2種類)を組み合わせて判断します。それぞれの分類を分かりやすく解説します。
1. 構造の変化による分類(主な3種類)もっとも基本となる、染色体がどのようにちぎれて結合したかによる分類です。① 相互転座(そうごてんざ)内容:2本の異なる染色体間で、断片が互いに入れ替わる現象です。特徴:すべての染色体で起こる可能性があり、転座の中で最も頻度が高いタイプです。② ロバートソン転座内容:端部着糸型染色体(13、14、15、21、22番)の2本の長腕(長い部分)同士が根元で結合し、1本になる現象です。特徴:短腕(短い部分)が消失するため、全体の染色体数が46本から45本に減少します。③ 挿入転座(そうにゅうてんざ)内容:1本の染色体から切り取られた断片が、別の染色体の途中に「割り込む(挿入される)」現象です。特徴:染色体が3箇所で切断される必要があるため、相互転座に比べて発生する確率は非常に稀です。
2. 遺伝情報の「量」による分類(2種類)転座が起きた結果、体を作るための遺伝情報(DNAの総量)に過不足があるかどうかでの分類です。本人の健康状態や次世代への影響を測る上で、非常に重要な指標となります。① 均衡型(きんこうがた)転座状態:位置は変わっていても、遺伝情報の総量に過不足(増減)がない状態です。影響:本人の体に必要な遺伝子はすべて揃っているため、完全に健康で症状もありません。ただし、生殖細胞を作る際に次の不均衡型が生じやすくなります。② 不均衡型(ふきんこうがた)転座状態:転座の結果、特定の遺伝情報が多くなりすぎたり(重複)、足りなくなったり(欠失)している状態です。影響:遺伝子のバランスが崩れるため、流産の原因になったり、生まれつきの先天性疾患や発育・発達の遅れに繋がったりします。
まとめ臨床の現場では、これらを組み合わせて「相互転座の均衡型」や「ロバートソン転座の不均衡型」のように表現します。
「ロバートソン転座の不均衡型」がイメージしにくい?
端部着糸型染色体(13、14、15、21、22番)の2本の長腕(長い部分)同士が根元で結合し、1本になる現象です。
端部着糸型染色体とは端部着糸型(たんぶちゃくしがた)染色体(別名:アクロセントリック染色体 / Acrocentric chromosome)とは、染色体のくびれ(セントロメア)が、真ん中ではなく「ほぼ一番端っこ」に偏っている染色体のことです。ヒトの染色体は顕微鏡で見ると、その形状(くびれの位置)によっていくつかのグループに分かれますが、その中の一つです。
端部着糸型染色体の端部着糸型語源は?
端部着糸型(たんぶちゃくしがた)」という名前の語源は、国際的な科学用語である英語の「Acrocentric(アクロセントリック)」を日本語に直訳したものです。言葉を「英語のルーツ」と「日本語の漢字」の2つに分解すると、その意味がとてもよく分かります。
1. 英語「Acrocentric」の語源ギリシャ語の2つの言葉が合体してできています。Acro-(アクロ):ギリシャ語の「akros」に由来し、「先端」「一番端っこ」「高いところ」という意味です。身近な例:高いところでアクロバットをする「アクロバット(Acrobat)」や、小高い丘の上の都市「アクロポリス(Acropolis)」の「アクロ」と同じです。-centric(セントリック):「中心」という意味です。染色体においては、くびれ部分である「セントロメア(動原体)」を指します。つまり、英語の本来の意味は「くびれ(中心)が、一番端っこ(アクロ)にある型」という意味になります。
2. 日本語「端部着糸型」の漢字の語源明治〜昭和時代初期の日本の科学者たちが、この「Acrocentric」という言葉を非常に忠実に、かつ分かりやすく漢字に翻訳しました。端部(たんぶ):「一番端っこ(Acro-)」の直訳です。着糸(ちゃくし):これは「紡錘糸(ぼうすいし)という糸が着く(くっつく)場所」という意味です。細胞分裂のとき、染色体のくびれ(セントロメア)には、染色体を引っ張るためのミクロの「糸」(紡錘糸)が結合します。そのため、昔の遺伝学ではセントロメアのことを「着糸点(ちゃくしてん)」と呼んでいました。現代では「動原体」といいます。型(がた):タイプのことです。これらが繋がって、「細胞を引っ張る糸がくっつく場所(着糸点)が、一番端っこ(端部)にあるタイプ」という意味の「端部着糸型」という言葉が生まれました。補足:現代の別の呼び方「着糸(ちゃくし)」という表現は少し古い医学用語(大正・昭和期に定着したもの)であるため、現在の高校の生物の教科書や最新の医学現場では、より直感的な言葉を使って、「端部動原体(たんぶどうげんたい)型」「末端動原体(まったんどうげんたい)型」と呼ばれることも増えています。(「動原体」は、糸がくっつくクッション部分の現代の正式名称です)。
1. 端部着糸型染色体はどんな形をしているのか?一般的な染色体は、くびれが真ん中にありアルファベットの「X」のような形をしています。しかし、端部着糸型染色体はくびれが極端に上に寄っているため、以下のような極端なアンバランスさを持っています。短腕(上の部分):マッチの頭や、ほんの少しの出っ張り(サテライトと呼ばれる構造)がある程度で、非常に小さい。長腕(下の部分):全体のほとんどを占める、長い1本の棒。見た目は「X」というよりも、アルファベットの「T」や「Y」、あるいは「針」のような形をしています。
2. ヒトにはどんな種類の染色体があるか?ヒトの46本の染色体のうち、以下の5種類(各2本ずつ、計10本)が端部着糸型染色体です。13番、14番、15番(大型・中型の染色体)21番、22番(小型の染色体)※男性が持つ「Y染色体」も形は近いですが、性質が少し異なるため通常はこの5つのグループ(Dグループ・Gグループ)に数えられます。
3. 最大の特徴:短腕に「重要な遺伝子がない」この13、14、15、21、22番染色体の非常に小さな「短腕(上の出っ張り)」部分には、体の設計図となる重要な遺伝子がほとんど入っていません。ここにあるのは、細胞の中でタンパク質を作る工場(リボソーム)の材料となるRNAのコピー(rRNA遺伝子)だけです。このrRNA遺伝子は、他の染色体にもたくさん予備があるため、端部着糸型染色体の短腕は、失くなっても体に全く問題がありません。だからこそ、[先ほどの折りたたみ傘やシャーペンの例え]のように、「短腕(消しゴムや持ち手)を落として、長腕(本体)同士を根元で合体させるロバートソン転座」が起きても、人間は情報不足にならず、何一つ症状のない健康な状態で生活できるのです。
何故染色体の短腕に重要な遺伝子を持たせなかったのですか?何故長腕(本体)だけに遺伝子を集中させたのですか?長腕を本体というのですか?
非常に興味深く、核心を突いた疑問ですね。なぜ「端部着糸型染色体」の短腕に大事な遺伝子がないのか、なぜ長腕に集中しているのか、そして呼び方の意味について、3つの質問に分けて分かりやすく解説します。
- なぜ短腕に重要な遺伝子を持たせなかったのか?(進化の理由)結論から言うと、これは生物が意図して設計したわけではなく、「長い進化の歴史の中で、大事な遺伝子を持たない特殊な短腕が生き残った(あるいは作られた)」という結果です。進化の過程では、染色体がちぎれたり、上下がひっくり返ったりするエラーが常に起きています。その中で、以下のような変化が起きました。予備がたくさんある情報だけが集まったヒトの13、14、15、21、22番の短腕には、タンパク質工場を作るための「rRNA遺伝子」しかありません。rRNA遺伝子の英語と訳と役割とは?rRNA遺伝子は、英語で “ribosomal RNA gene”(リボソーマル アールエヌエー ジーン) と言います。学術的には省略して “rDNA” と呼ばれることも一般的です。日本語では 「リボソームRNA遺伝子」 と訳されます。この遺伝子の最大の役割は、細胞内でタンパク質を組み立てる巨大な工場である「リボソーム(Ribosome)」の骨格(パーツ)と、組み立てを行うための「職人の手(酵素)」となるRNAを作り出すことです。具体的な3つの役割と特徴を、順を追って分かりやすく解説します。1. 工場の「骨組み(構造)」を作る生物の細胞内では、常に体を作るためのタンパク質が合成されています。その合成を行う工場が「リボソーム」です。リボソームはタンパク質とRNAが組み合わさってできていますが、その全体の7〜8割という大部分の骨格を形作っているのが、rRNA遺伝子から作られるrRNA分子です。2. アミノ酸を繋ぐ「職人の手(触媒活性)」として働くかつてRNAは、単なる工場の「壁」や「骨組み」の部品にすぎないと考えられていました。しかし研究が進むにつれ、rRNAはアミノ酸同士をガッチャンコと繋ぎ合わせてタンパク質の鎖を作る、主役の「酵素(触媒)」として直接働いていることが判明しました(リボザイムとも呼ばれます)。設計図(mRNA)を読み取り、運ばれてきた部品(アミノ酸)を瞬時に溶接していく、工場の心臓部を担っています。3. だからこそ「大量の予備」が必要(最初の質問との繋がり)タンパク質の合成は、1秒たりとも休めない命の営みです。そのため、細胞内には膨大な数のリボソーム工場が必要です。工場を急ピッチで大量生産するために、ヒトの細胞内にはrRNA遺伝子が約200〜400コピーという桁違いの「予備(バックアップ)」として用意されています。この大量の予備が、[先ほど解説した端部着糸型染色体(13, 14, 15, 21, 22番)の短腕]にぎっしりと並んでいます。どこか1箇所の短腕がちぎれて失くなっても、他の染色体に予備がいくらでもあるため、私たちは何の影響もなく元気に生きていけるのです。まとめ英語:ribosomal RNA gene (rDNA)和訳:リボソームRNA遺伝子役割:タンパク質合成工場(リボソーム)の「骨格」を作り、アミノ酸を繋ぐ「酵素」として働く、生命の維持に最重要な遺伝子。rRNAやリボソームの働きについて、さらに気になったポイントはありますか?もう一つの重要なRNAである tRNA(転移RNA) との役割の違いリボソームが設計図を読み取る 「翻訳(ほんやく)」 の具体的な仕組みなぜrRNAは 生物の進化の歴史(系統樹) を調べるのに使われるのかこの遺伝子は生きていくのに超重要ですが、5つの染色体のすべての短腕(計10箇所)に、同じものが「バックアップ(予備)」として大量にコピーされています。なくなっても死なないから変化が自由だった他の染色体(例えば1番や2番など)の短腕には、心臓や脳を作るための「代えがきかない唯一の遺伝子」が詰まっています。そのため、そこがちぎれると生物は生まれることすらできません(生存に不利なため進化から消える)。しかし、端部着糸型染色体の短腕は「どれか1つや2つがちぎれて無くなっても、他の染色体の予備があるから死なない」という、究極にタフなセーフティゾーンでした。そのため、ちぎれたり合体したりする激しい変化(ロバートソン転座など)を起こした個体が、そのまま現代まで生き残ることができたのです。
2. なぜ長腕に遺伝子を集中させたのか?これには、細胞分裂のときに「遺伝子を安全に、正確に2つに分けるため」という、構造上の大きなメリットがあります。バラバラに散らばるより、1つにまとまっていた方が安全細胞分裂のとき、染色体は真ん中のくびれ(セントロメア)に糸がくっつき、左右にギューッと引っ張られます。もし、1つの染色体の「上(短腕)」と「下(長腕)」の両方に大事な遺伝子がバラバラに分散していると、引っ張られた衝撃でどちらかがちぎれたり、迷子になったりしたときに、即座に致命傷(重大な遺伝子欠損)になります。長腕にすべてを乗せておけば、まとめて引っ張れる大事な遺伝子をすべて「長腕という1本の太いロープ(車両)」に乗せておけば、くびれ(セントロメアという牽引車)が引っ張られたときに、すべての遺伝子が芋づる式に、確実に、安全に次の細胞へ移動できます。端部着糸型染色体は、リスクのある「短腕」側の荷物をすべて空っぽにして予備だけにし、すべての本命の荷物を「長腕」に集中させることで、細胞分裂のエラーから大切な遺伝子を守っているのです。
3. 長腕を「本体」というのですか?学術的な正式名称はあくまで「長腕(ちょうわん / qアーム)」ですが、「実質的な遺伝子の本体(メインパート)」と言って間違いありません。遺伝学の解説や医療の現場でも、分かりやすく説明するために「端部着糸型染色体は、実質的に長腕(本体)だけでできているようなもの」 と表現されることがよくあります。短腕(p) = 飾り、バックアップ用のミニパーツ(最悪、失くなってもいい)長腕(q) = 染色体の価値を決める、固有の遺伝子が詰まった「本体」このように、機能の面から見れば「長腕=本体」という捉え方は非常に的確です。生物の体は、予備をたくさん作ることで、一部がちぎれるような大事故(転座)が起きても無症状でいられるような「遊び(余裕)」を持たせているのが非常に面白いところですね。今回の「進化や構造の仕組み」について、ご納得いただけましたでしょうか?もしさらに掘り下げたい点や、新たな疑問があれば教えてください。1番や2番など、他の染色体の遺伝子の配分はどうなっているのか遺伝子が集中している長腕が傷つくと、どんな病気(がんなど)になるのか染色体の「p(短腕)」や「q(長腕)」という名前の由来
2本の長腕(長い部分)同士が根元で結合し、1本になる現象がイメージできました。ロバートソン転座の「2本の長腕が根元で結合して1本になる」という変化は、「T字型のパーツを2つ並べ、上の小さな出っ張りをちぎって、残った長い棒同士を横に繋いで1本の大きなV字(または1本の長い棒)にする」というイメージです。順を追って図解します。
- 元の染色体の形(端部着糸型)13番や21番などの染色体は、アルファベットの「T」や「Y」に近い特殊な形をしています。中央の結合部(セントロメア)が極端に上の端に寄っているため、以下のように長さが極端に違います。短腕(上の出っ張り):非常に短く、重要な遺伝子がほぼ入っていない。長腕(下の長い足):非常に長く、大切な遺伝子がぎっしり詰まっている。
【元の染色体 A】 【元の染色体 B】
(短腕) (短腕)
▲ ▲
● (根元) ● (根元)
┃ ┃
┃ (長腕) ┃ (長腕)
┃ ┃
- 根元でちぎれる(切断)転座が起きるとき、この2本の染色体がどちらも「根元(セントロメアのすぐ近く)」で真横にちぎれます。
(短腕) ▲ ×ちぎれる ▲ ×ちぎれる
━━━━━━━━━━━━━━━━━━━━━━━━━━━━━
(根元) ● ●
┃ ┃
(長腕) ┃ ┃
┃ ┃
ここで、上の「短腕(▲)」のミニパーツ2つと、下の「長腕(●+┃)」のロングパーツ2つに分かれます。
- 長い部分同士が合体(結合)ちぎれた後、細胞が間違えて下のロングパーツ(長腕)同士の根元をガッチャンコと溶接するように結合させてしまいます。
- 【合体した新しい1本の染色体】
●━━━● (根元の部分で結合)
┃ ┃
┃ ┃ (2本分のがっしりした長腕)
┃ ┃
このように、根元(セントロメア)のところで2つの長腕が左右に並ぶか、あるいは1つの根元を共有する形で、「2本だったはずの染色体が、完全に一体化した1本の巨大な染色体」に生まれ変わります。これが「根元で結合して1本になる」という現象です。
5. 残された短い腕はどうなる?切り離された上のミニパーツ(短腕)同士もくっつきますが、細胞分裂の途中で迷子になり、自然と消えてなくなってしまいます。しかし、ここには元々「あってもなくても困らない情報」しか書かれていないため、消滅しても体に影響はありません。結果として、大事な長腕2本分が、1本の大きな染色体の中に安全にキープされるため、この転座が起きても本人は完全に健康に生きていくことができます。
2本が1本に合体した結果、なぜ染色体の総数が45本に数えられるのか?この合体した染色体が、子どもに遺伝するときにどう分かれるのか?2本が1本に合体した結果、なぜ染色体の総数が45本に数えられるのか?この合体した染色体が、子どもに遺伝するときにどう分かれるのか?2本が1本に合体して総数が45本になる理由と、それが子どもに遺伝するときの分かれ方について、図を使って分かりやすく解説します。
1. なぜ全体の数が「45本」に減るのか?
人間の染色体は、通常は2本ずつのペアが23組あり、合計46本(23組 × 2本)あります。
例えば、14番染色体(2本)と21番染色体(2本)を考えてみましょう。通常は計4本あります。
ロバートソン転座が起きると、このうちの14番の1本と、21番の1本が根元でガッチャンコと合体して「14-21合体染色体」という1本の大きな染色体になります。
- 通常:[14番]、[14番]、[21番]、[21番] = 計4本
- 転座後:[14番]、[21番]、[14-21合体] = 計3本(※バラの2本が合体して1本になったため、数が1本減ります)
他の22組(42本)の染色体はそのままなので、全体を数えると 42本 + 3本 = 45本 になります。
大事な遺伝子(長腕)は合体した中にすべて残っているため、数が45本に減っても、体に必要な遺伝情報の量は100%揃っており、本人は完全に健康です。
2. 子どもに遺伝するとき、どう分かれるのか?
子どもに遺伝する(精子や卵子を作る)とき、染色体はペアごとに1本ずつに分かれます。
しかし、この「3本(14番、21番、14-21合体)」は少し特殊な分かれ方をします。
精子や卵子に入るときの分かれ方は、主に以下の3つのパターン(計6種類)に分かれます。
パターンA:親と同じになる(健康に生まれる確率:全体の約3分の2)
- ① 完全に正常パターン
バラの[14番]と[21番]が子に遺伝します。子どもは通常通り46本の正常な染色体を持って生まれます。 - ② 親と同じ「均衡型」パターン
[14-21合体] だけが子に遺伝します。子どもは親と全く同じ45本になりますが、遺伝子の量は揃っているため、完全に健康に生まれます。
パターンB:遺伝子が多くなりすぎる(21トリソミーなど)
- ③ 転座型ダウン症パターン
[14-21合体] と、バラの[21番]の2本が同時に子に遺伝します。
もう一方の親(正常)から通常の21番をもらうため、子どもは21番の遺伝子を合計3本分持つことになり、「転座型ダウン症候群(21トリソミー)」として生まれます(染色体数は46本)。 - ※14番が3本分になるパターン(14トリソミー)も一瞬作られますが、お腹の中で育つことができず自然流産となります。
パターンC:遺伝子が足りなくなる(欠失)
- ④ 遺伝子が足りないパターン
14番または21番のどちらかが完全に欠けた精子や卵子ができます。これらは遺伝情報が足りないため、受精しても育つことができず、妊娠に至らないか、ごく初期の自然流産となります。
遺伝のまとめ
無事に妊娠・出産を迎えて生まれてくる子どもに限ると、確率は以下のようになります。
- 完全に正常な子(染色体46本・健康)
- 親と同じ転座を持つ子(染色体45本・健康)
- 転座型ダウン症の子(染色体46本・症状あり)
基本的にはこの3つの可能性のいずれかになります。
染色体の転座(てんざ)には、主に①相互転座と②ロバートソン転座の2つのタイプがあります。これらは染色体の一部が切れて別の染色体にくっつく現象ですが、発生する染色体の種類や、構造の変化の仕方に大きな違いがあります。
- 相互転座(そうごてんざ)仕組み:異なる2本の染色体がそれぞれ1カ所ずつちぎれ、パーツを「お互いに交換」してくっつきます。体への影響:遺伝子の総量(文字数)は増えも減りもしないため、本人には症状が出ないことが多く、これを「均衡型(きんこうがた)」と呼びます。ただし、次世代に遺伝するときに過不足が生じ、不妊や流産の原因になることがあります。
- ロバートソン転座仕組み:頭の短い特殊な染色体(13, 14, 15, 21, 22番)同士が、根元で丸ごと1本にくっついてしまう現象です。体への影響:染色体の本数が46本から45本に減りますが、重要な遺伝子は失われないため、本人には自覚症状がないケースがほとんどです。
なぜ転座が起きると「がん」になるのか?基本的には無症状なことが多い相互転座ですが、「ちぎれた場所」がたまたま重要な遺伝子の真上だった場合、がんを引き起こす強力なスイッチが入ってしまいます。異常な合体遺伝子(融合遺伝子)の誕生:遺伝子が途中でちぎれて別の遺伝子と合体することで、本来の体内には存在しない「異常なアクセルを踏み続けるタンパク質」が作られてしまいます。有名な例:フィラデルフィア染色体9番染色体と22番染色体が転座を起こし、「BCR-ABL」という異常な融合遺伝子ができることで、白血球が無制限に増殖する慢性骨髄性白血病(CML)を発症します。
遺伝子の不整合(ミスマッチ)と転座との違い:MLH1(不整合)などの不整合修復:1文字単位のコピーミス(スペルミス)を直す。転座:本のページ(あるいは章ごと)がごっそり入れ替わるような、大規模なエラー。
何故ゲノムが不安定化するのか?修復メカニズムの故障:MLH1やBRCA1/2など、DNAの傷を直す遺伝子(がん抑制遺伝子)が生まれつき、または後天的に働かなくなるためです。外的なダメージの蓄積:紫外線、タバコ、活性酸素、化学物質などによって、DNAが直せる限界を超えて傷つくためですというのは嘘です。本当の原因はヘルペスによるがん抑制遺伝子の変異によるものです。
ゲノムが不安定化すると同なるのでしょうか?がん化の加速:細胞のブレーキ役(がん抑制遺伝子)が壊れ、アクセル役(がん遺伝子)が暴走しやすくなり、細胞が無限に増殖する「がん細胞」に変化します。治療への抵抗性:がん細胞の中でもさらに遺伝子変化がランダムに進むため、抗がん剤や放射線治療が効きにくい、悪性度の高いがん細胞が生まれやすくなります。癌の初めの原因はヘルペスですからヘルペスを増やさないようにすることです。つまりherpesウイルスを核の中にいつまでも潜伏感染させてしまえば済むことです。
父親由来と母親由来の両方のガン抑制遺伝子が変異で機能を失ったときに初めてがん化が始まる「ツー・ヒット説(Two-Hit Hypothesis)」とは何でしょうか?2つの遺伝子の破壊: ヒトの細胞は同じがん抑制遺伝子を2つ(父親由来と母親由来)持っています。がん化の成立: 1つ目が変異しても、もう1つが正常なら機能は保たれ癌にはならないのです。
ガン発生のツー・ヒット説(Two-Hit Hypothesis)とは何でしょうか?
ガン発生のツー・ヒット説(Two-Hit Hypothesis 2ヒット説)は、「がん抑制遺伝子」が完全にブレーキとしての機能を失ってがん化するには、2つのペア(対立遺伝子)の両方に異常(ヒット)が起きる必要があるという理論です。1971年に遺伝学者のアルフレッド・クヌッドソン博士が、小児の眼のがんである「網膜芽細胞腫(RB)」の統計解析から提唱しました。車のブレーキに例えた仕組み私たちの細胞には、父親由来と母親由来の2つの同じがん抑制遺伝子(ペア)が備わっています。これは車の「主ブレーキ」と「副ブレーキ」のような関係です。1回目のヒット(片方が壊れる)片方のブレーキが壊れても、もう片方のブレーキが正常に働いているため、細胞は暴走(がん化)しません。2回目のヒット(両方が壊れる)残ったもう片方のブレーキも壊れてしまうと、完全にコントロールを失い、細胞が無制限に増殖を始めて「がん」になります。
「遺伝性のがん」と「突然変異(非遺伝性)のがん」の違いクヌッドソン博士はこのガン発生のツー・ヒット説(Two-Hit Hypothesis/2ヒット説)とは、「がん抑制遺伝子」が完全にブレーキとしての機能を失ってがん化するには、2つのペア(対立遺伝子)の両方に異常(ヒット)が起きる必要があるという理論です。
1971年に遺伝学者のアルフレッド・クヌッドソン博士が、小児の眼のがんである「網膜芽細胞腫(RB)」の統計解析から提唱しました。
車のブレーキに例えた仕組み
私たちの細胞には、父親由来と母親由来の2つの同じがん抑制遺伝子(ペア)が備わっています。これは車の「主ブレーキ」と「副ブレーキ」のような関係です。
- 1回目のヒット(片方が壊れる)
- 片方のブレーキが壊れても、もう片方のブレーキが正常に働いているため、細胞は暴走(がん化)しません。
- 2回目のヒット(両方が壊れる)
- 残ったもう片方のブレーキも壊れてしまうと、完全にコントロールを失い、細胞が無制限に増殖を始めて「がん」になります。
「遺伝性のがん」と「突然変異(非遺伝性)のがん」の違い
クヌッドソン博士はこの説を用いて、同じがんでも「生まれつき遺伝するタイプ」と「そうでないタイプ」で発症年齢や特徴が大きく異なる理由をきれいに説明しました。 [1, 2]
| 分類 | 1回目のヒット(ファースト・ヒット) | 2回目のヒット(セカンド・ヒット) | 特徴 |
| 遺伝性のがん (リンチ症候群、家族性大腸ポリポーシスなど) | 生まれつき片方の遺伝子が壊れている(親から遺伝) | 生きていく途中で、もう片方が壊れる(体細胞変異) | あと1回壊れるだけでがん化するため、若い年齢で、複数の場所にがんが発生しやすい。 |
| 突然変異のがん (非遺伝性・一般的ながん) | 生きていく途中で、片方が壊れる | さらに同じ細胞で、もう片方も壊れる | 1つの細胞で2回も偶然エラーが重なる必要があるため、高齢になってから、単発で発生することが多い。 |
これまでの話(MLH1)とのつながり
以前の質問に出てきた「MLH1」もまさにがん抑制遺伝子の一つです。
生まれつきMLH1の片方が壊れている(ファースト・ヒット)のが「リンチ症候群」という遺伝性疾患です。
しかし、この段階ではまだもう片方が生きているため、がんは発症していません。日々の生活の中で、たまたま大腸や子宮の細胞でもう片方のMLH1も壊れる(セカンド・ヒット)ことで、前述の「ゲノムの不安定化」が一気に進み、がんが発症することになります。
ツー・ヒット説の例外(片方が壊れただけでがん化するハプロ不全など)と最初にこの説が証明された「RB遺伝子」や「p53遺伝子」について?
ツー・ヒット説の例外(片方が壊れただけでがん化するハプロ不全など)と最初にこの説が証明された「RB遺伝子」や「p53遺伝子」についてツー・ヒット説の例外である「ハプロ不全」と、この説の基礎となった「RB遺伝子」・「p53遺伝子」について詳しく解説します。
1. ツー・ヒット説の例外:「ハプロ不全(Haploinsufficiency)」ツー・ヒット説では「2つの遺伝子が両方壊れないとがん化しない」とされましたが、研究が進むにつれ、「片方が壊れた(1ヒット)だけでブレーキが効かなくなる遺伝子」があることが分かりました。これをハプロ不全(ハプロタイプ不全)と呼びます。仕組み:遺伝子が1つ(Haplo)になったことで、作られるタンパク質の量が通常の半分(50%)に減ってしまいます。この半分という量では、細胞の暴走を抑えるのに「足りない(不全)」状態になります。車のブレーキに例えると:2つあるブレーキのうち、1つが壊れただけでブレーキの効きが半分になり、車を完全に止められなくなって徐々にスピードが上がってしまう状態です。がん化への影響:2回目のヒット(セカンド・ヒット)を待たずして、1回目のヒットの時点で細胞のゲノムが不安定になり、がん化のプロセスが始まってしまいます。
2. 最初にツー・ヒット説が証明された「RB遺伝子」クヌッドソン博士がツー・ヒット説を提唱するきっかけとなり、人類が最初に発見した「がん抑制遺伝子」がRB遺伝子です。役割:細胞が分裂して増えるサイクル(細胞周期)を「進めるな」と止めてしまう非常に強力なブレーキ役です。証明された疾患:小児の眼の腫瘍である「網膜芽細胞腫(Retinoblastoma:頭文字をとってRB)」です。遺伝型:生まれつき片方のRB遺伝子が壊れているため、乳幼児期(網膜の細胞が激しく増殖する時期)に、もう片方が偶然壊れるとすぐに両眼に複数のがんができます。非遺伝型:両方の遺伝子がたまたま同じ細胞で壊れる必要があるため、発症が遅く、片方の眼だけに単発でがんができます。この発症パターンの違いを数学的に解析したことで、ツー・ヒット説の正しさが証明されました。
3. 「ゲノムの守護神」と呼ばれる「p53遺伝子」p53遺伝子は、あらゆるがんの半数以上で異常が見つかる、体内でもっとも重要な「がん抑制遺伝子」です。役割:DNAに傷(不整合や切断)がついたときにこの傷ついたDNAの一部の遺伝子
it、細胞の増殖をピタッと止め、修復チームを呼び寄せます。もし傷が深すぎて直せない場合は、細胞ごと自滅(アポトーシス)させて、がん化を未然に防ぎます。この万能さから「ゲノムの守護神(Guardian of the Genome)」と呼ばれています。p53とハプロ不全の関係:p53は、実は「ハプロ不全」の性質を強く持つ遺伝子です。片方のp53遺伝子が壊れて量が半分になると、DNAの傷を監視する能力がガクンと落ち、セカンド・ヒットが起きる前からがん化のリスクが跳ね上がります(生まれつき片方のp53が壊れている遺伝性疾患を「リー・フラウメニ症候群」と呼びます)。
説を用いて、同じがんでも「生まれつき遺伝するタイプ」と「そうでないタイプ」で発症年齢や特徴が大きく異なる理由をきれいに説明しました。分類1回目のヒット(ファースト・ヒット)2回目のヒット(セカンド・ヒット)特徴遺伝性のがん(リンチ症候群、家族性大腸ポリポーシスなど)生まれつき片方の遺伝子が壊れている(親から遺伝)生きていく途中で、もう片方が壊れる(体細胞変異)あと1回壊れるだけでがん化するため、若い年齢で、複数の場所にがんが発生しやすい。突然変異のがん(非遺伝性・一般的ながん)生きていく途中で、片方が壊れるさらに同じ細胞で、もう片方も壊れる1つの細胞で2回も偶然エラーが重なる必要があるため、高齢になってから、単発で発生することが多い。これまでの話(MLH1)とのつながり以前の質問に出てきた「MLH1」もまさにがん抑制遺伝子の一つです。生まれつきMLH1の片方が壊れている(ファースト・ヒット)のが「リンチ症候群」という遺伝性疾患です。しかし、この段階ではまだもう片方が生きているため、がんは発症していません。日々の生活の中で、たまたま大腸や子宮の細胞でもう片方のMLH1も壊れる(セカンド・ヒット)ことで、前述の「ゲノムの不安定化」が一気に進み、がんが発症することになります。このツー・ヒット説について、さらに深掘りしたい部分はありますか?ツー・ヒット説の例外(片方が壊れただけでがん化するハプロ不全など)最初にこの説が証明された「RB遺伝子」や「p53遺伝子」について
さらに詳しく知りたい項目はありますか?以下からお選びいただけます。p53遺伝子が壊れたときの具体的な細胞の挙動について知りたいツー・ヒット説(Knudsonの仮説)の具体例や例外について知りたい遺伝子の機能が「失われる変異」と「高まる変異」の違いについて知りたい
②ヘルペスによる遺伝子の機能を変化させる突然変異が発がんをもたらすメカニズムとは?ヘルペスによる遺伝子の機能を変化させる突然変異(機能獲得変異・機能変化変異)による発がんは、主にがん原遺伝子が「がん遺伝子」へと活性化することで引き起こされます。遺伝子が壊れて動かなくなるのではなく、「異常なスイッチが入りっぱなしになる」「本来とは違う狂った働きをする」ことで細胞が暴走します。1. シグナル伝達の常時ON(アクセルが踏みっぱなしになる)受容体の異常結合: EGFRなどの細胞表面にある受容体遺伝子が変異すると、増殖シグナル(成長因子)が来ていないのにつねに「増殖せよ」という命令を細胞内部に送り続けます。スイッチタンパク質の固定: KRASなどの内部シグナル分子は、通常ONとOFFが切り替わりますが、アミノ酸が1つ変わる変異によってONの状態から戻らなくなり、細胞を分裂させ続けます。2. 基質特異性の変化(本来と違う物質を作る)悪性代謝物の産生: 代謝酵素であるIDH1/2遺伝子に変異が起こると、本来の代謝を行わなくなります。代わりに2-ヒドロキシグルタル酸(2-HG)という異常な物質を大量に作り出します。エピゲノムの異常: この2-HGが細胞内に蓄積すると、DNAのメチル化状態(遺伝子のスイッチの入れ方)を狂わせ、がん化に必要な他の遺伝子群をまとめて暴走させます。3. 融合遺伝子の形成(狂ったハイブリッド遺伝子の誕生)染色体の入れ替わり: 染色体が途中で切れて別の染色体とくっつく「転座」が起きると、2つの異なる遺伝子が融合した異常なハイブリッドタンパク質が作られます。白血病などの原因: 代表例であるBCR-ABL融合遺伝子(慢性骨髄性白血病の原因)は、強力かつ制御不能なチロシンキナーゼ(増殖酵素)活性を持ち、血液細胞を爆発的に増やします。4. ドミナントネガティブ効果(正常な相方を巻き添えにする)4量体の破壊: 一部の変異タンパク質は、1つ混ざるだけで周囲の正常なタンパク質の働きまで道連れに阻害します。p53の機能変化: p53は4つの分子が集まって働きますが、変異して構造が変わったp53が1つ混ざると、残り3つの正常なp53の働きまで完全に麻痺し、がん抑制機能を失わせます。さらに深掘りしたい仕組みはありますか?EGFRやKRASを標的にした分子標的薬の仕組みを知りたいIDH変異(脳腫瘍などで見られる代謝異常)について詳しく知りたいBCR-ABL(フィラデルフィア染色体)の発見と治療の歴史を知りたい
③ヘルペスによるタンパク質の過剰生産による発がんのメカニズムとは?
Herpesによるタンパク質の過剰生産による発がんは、細胞増殖シグナルの恒常活性化、細胞周期チェックポイントの破綻、およびDNA複製の物理的ストレスによって引き起こされます。具体的には、がん原遺伝子の増幅や変異によるタンパク質の過剰発現、アポトーシス(細胞死)制御因子の異常、および核酸構造の破綻が主な要因となります。シグナル伝達と細胞増殖の異常がん遺伝子の活性化: 通常は外からの刺激に応じて細胞分裂のスイッチを入れるRasなどのタンパク質が、遺伝子変異や過剰生産により常に「オン」の状態(恒常活性化)になります。細胞周期の加速: MYCなどの転写調節タンパク質が過剰発現すると、細胞分裂のプロセス(細胞周期)を不必要に推し進め、異常な細胞増殖を引き起こします。また、細胞周期を止める働きを持つp27などの抑制タンパク質が、過剰生産された別の因子によって異常分解されるケースもあります。抑制機構の破綻とDNA損傷がん抑制タンパク質の不活化: p53などの重要ながん抑制タンパク質は、通常であれば異常な細胞を排除または修復しますが、それを標的として過剰に分解・抑制するMdm2などのタンパク質が過剰発現することで、防御システムが破綻します。R-loop構造とゲノム不安定性: テロメラーゼや特定の酵素・タンパク質の過剰生産は、ゲノムDNAとRNAが異常に結合した「R-loop構造」を過剰に生じさせ、これがDNAの深刻な損傷や突然変異の蓄積、ひいてはがん化を誘発します。もしよろしければ、次のような詳細についてもお答えできます:特定のタンパク質や遺伝子(Ras, p53, MYCなど)に関する詳細多段階発がんの具体的なプロセスどの部分をさらに詳しく知りたいですか?遺伝子の機能を失わせる突然変異が発がんをもたらすメカニズムとは?遺伝子の機能を失わせる突然変異(機能喪失変異)による発がんは、主にがん抑制遺伝子の不活化によって引き起こされます。細胞のブレーキ役や修理機能が失われることで、異常な細胞が無制限に増殖します。がん抑制遺伝子の不活化(ブレーキの喪失)細胞周期の制御不能: Rb遺伝子などのブレーキ役が壊れると、細胞分裂の停止シグナルが効かなくなり、細胞が絶え間なく増殖します。アポトーシスの消失: p53遺伝子などが変異すると、異常細胞を自死させる仕組み(アポトーシス)が働かず、生存し続けます。DNA修復機構の破綻(ミスの蓄積)修復エラーの放置: BRCA1/2や不整合修復遺伝子(MLH1など)の機能が失われると、日常的なDNAのコピーミスを直せなくなります。ゲノムの不安定化: 遺伝子の傷が修復されずに放置されるため、他の遺伝子にも次々と突然変異が積み重なり、がん化が加速します。「ツー・ヒット説(Two-Hit Hypothesis)」2つの遺伝子の破壊: ヒトの細胞は同じ遺伝子を2つ(父親由来と母親由来)持っています。がん化の成立: 1つ目が変異しても、もう1つが正常なら機能は保たれますが、両方の遺伝子が変異で機能を失ったときに初めてがん化が始まります。さらに詳しく知りたい項目はありますか?以下からお選びいただけます。p53遺伝子が壊れたときの具体的な細胞の挙動について知りたいツー・ヒット説(Knudsonの仮説)の具体例や例外について知りたい遺伝子の機能が「失われる変異」と「高まる変異」の違いについて知りたい
herpesウイルスがどのようにかつ何故癌を起こす原因となるのか?
herpesウイルスが発がんにかかわる遺伝子の突然変異を起こす原因のタイプには3つあります。①遺伝子の機能を失わせる突然変異②遺伝子の機能を変化させる突然変異③タンパク質の過剰生産を起こす突然変異はヘルペスが感染細胞の核の中で溶解感染でビリオンをたいりょうの増殖分裂させ10万個~100万個以上にも増えると細胞は身ぐるみ利用されつくされ最後は細胞が死滅するまでに核に存在していたDNAや遺伝子がすべて破壊され上にあげた3つの異常な突然変異となる①遺伝子の機能を失わせる突然変異②遺伝子の機能を変化させる突然変異③タンパク質の過剰生産を起こす突然変異の3つの突然変異を起こす原因となるのです。癌細胞が生まれててガンが起こるのではなくヘルペス感染症がこの世に存在しない正常な細胞を殺しすぎてしまうので最後はヘルペスに生き続けるためにエネルギーや5大栄養素や核酸などの必須成分をヘルペスビリオンにすべて吸い取られれしまってカヘキシアという栄養失調でガリガリになってヘルペスに殺されてしまうのです。がん細胞という細胞は存在しません。この世に増殖関連遺伝子はありますが、癌関連遺伝子は存在しません。ましてや癌原遺伝子も癌抑制遺伝子もありません。もちろん遺伝子の突然変異はありますがDNAの突然変異も一切ありません。
発がんに関わる遺伝子のヘルペスウイルスによって生み出された突然変異は、その変化の仕方に注目すると、3つのタイプである①機能喪失、②機能変化、③タンパク質の過剰生産に美しく分類されます。
③タンパク質の過剰生産による発がんは、細胞増殖シグナルの恒常活性化、細胞周期チェックポイントの破綻、およびDNA複製の物理的ストレスによって引き起こされます。具体的には、がん原遺伝子の増幅や変異によるタンパク質の過剰発現、アポトーシス(細胞死)制御因子の異常、および核酸構造の破綻が主な要因となります。シグナル伝達と細胞増殖の異常がん遺伝子の活性化: 通常は外からの刺激に応じて細胞分裂のスイッチを入れるRasなどのタンパク質が、遺伝子変異や過剰生産により常に「オン」の状態(恒常活性化)になります。細胞周期の加速: MYCなどの転写調節タンパク質が過剰発現すると、細胞分裂のプロセス(細胞周期)を不必要に推し進め、異常な細胞増殖を引き起こします。また、細胞周期を止める働きを持つp27などの抑制タンパク質が、過剰生産された別の因子によって異常分解されるケースもあります。抑制機構の破綻とDNA損傷がん抑制タンパク質の不活化: p53などの重要ながん抑制タンパク質は、通常であれば異常な細胞を排除または修復しますが、それを標的として過剰に分解・抑制するMdm2などのタンパク質が過剰発現することで、防御システムが破綻します。R-loop構造とゲノム不安定性: テロメラーゼや特定の酵素・タンパク質の過剰生産は、ゲノムDNAとRNAが異常に結合した「R-loop構造」を過剰に生じさせ、これがDNAの深刻な損傷や突然変異の蓄積、ひいてはがん化を誘発します。もしよろしければ、次のような詳細についてもお答えできます:特定のタンパク質や遺伝子(Ras, p53, MYCなど)に関する詳細多段階発がんの具体的なプロセス
これらは、がんを引き起こす「アクセルの暴走」や「ブレーキの破壊」が、分子レベルでどのように起きているかを説明する基本原則ですが説明のすべてが間違っているのです。がん細胞ではなくヘルペスが感染した細胞は存在しますががん細胞ではないからなのです。
ただしherpesが感染している細胞の核にどれだけherpes増えているのかどれだけそのために核の中にある60億個のヌクレオチドからできているDNAがどれだけ損傷を受けたとか、DNAの1,5%を占める23500個の遺伝子のうちの800個が増殖関連遺伝子がDNAの一部となっているのでDNAの損傷の影響を受けることもありますがそのDNAの損傷の99,99999999%は完全に修復されるのでその結果、増殖関連遺伝子の傷も完ぺきに修復されるので何一つ遺伝子の突然変異は絶対に起こりようがないのです。然し以下で説明していく3種類の様々な遺伝子の突然変異はヘルペスの増え方やヘルペスの増えた数や免疫の強さやの度合いやヘルペスが傷つけてしまうDNAの傷の大きさや数やヘルペスによって傷つけられたDNAの影響を受けた遺伝子の4つの塩基の数やさらに染色体転座の度合いとかによって遺伝子の変異の閣下。その変異した遺伝子から作られたたんぱく質の異常がいわゆるがんを引き起こす「アクセルの暴走」や「ブレーキの破壊」などと呼ばれる分子レベルでの異常がおこってしまうのです。このような分子レベルの異常もすべてヘルペスウイルスがもたらしたものなのです。
3つのタイプである①機能喪失、②機能変化、③タンパク質の過剰生産のそれぞれのメカニズムを、具体例やがんの種類を交えて詳しく解説していきましょう。① 遺伝子の機能を失わせる突然変異(機能喪失:Loss of Function)遺伝子の設計図が途中で途切れたり、重要な部分が書き換わったりすることで、本来作られるべきタンパク質が作られなくなるか、作られても全く働かないゴミになってしまう変異です。主なターゲット:がん抑制遺伝子(細胞のブレーキ役や修理職人)メカニズム:ナンセンス変異:DNAの配列に「ここでタンパク質合成を終了せよ」というストップサイン(終止コドン)が予定より手前にできてしまい、途中でち切れた未完成のタンパク質ができます。フレームシフト変異:DNAの文字が1〜2文字抜ける(欠失)、または入る(挿入)ことで、それ以降の読み枠がすべてズレてしまい、全く別物の無意味なタンパク質になります。具体例:TP53遺伝子:細胞の自爆装置やDNA修復を司る「がんの守護神」です。この遺伝子が機能喪失変異を起こすと、細胞は異常を検知しても止まることができず、がん化へ突き進みます。BRCA1/2遺伝子(遺伝性乳がん卵巣がん症候群の原因):DNAの傷を直す職人タンパク質ですが、変異で機能が失われると、細胞にコピーミスがみるみる蓄積していきます。② 遺伝子の機能を変化させる突然変異(機能変化・獲得:Gain of Function)遺伝子の機能が失われるのではなく、「本来とは違う新しい能力を獲得する」、あるいは「スイッチがONのまま固定されて切れなくなる(異常な活性化)」という変異です。主なターゲット:がん遺伝子(細胞のアクセル役)メカニズム:ミスセンス変異:DNAの文字が1文字だけ変わり、タンパク質を構成するアミノ酸が1つだけ別のものに置き換わります。これにより、タンパク質の立体構造が変わり、「成長因子(シグナル)が来ていないのに、勝手に下流へ増殖命令を出し続ける」という暴走状態になります。融合遺伝子(遺伝子の合体):染色体が途中でちぎれて別の染色体とくっつく(転座)ことで、2つの異なる遺伝子が合体した「新型の異常タンパク質」が誕生します(前述のAPLの原因タンパク質もこれです)。具体例:RAS(K-RASなど)遺伝子:大腸がんや膵がんで有名です。1箇所のアミノ酸が変わるだけで、通常ならすぐにOFFになるスイッチが「永久にON」になり、細胞に「増殖せよ」と叫び続けます。EGFR遺伝子:肺がんで多く見られ、受容体の一部が変異することで、外からの刺激がなくても自律的に増殖シグナルを流し続けます。③ タンパク質の過剰生産を起こす突然変異(過剰発現:Overexpression)タンパク質の構造そのものは「正常(野生型)」ですが、作る量のコントロールが壊れ、通常の何十倍、何百倍もの量が細胞内に溢れかえる変異です。主なターゲット:がん遺伝子(受容体やシグナル分子)メカニズム:遺伝子増幅(Amplification):細胞が分裂する際のミスで、本来1細胞に2個(ペア)しかないはずの特定の遺伝子のコピー数が、数十〜数百個にコピーされて増えてしまう現象です。設計図の数自体が増えるため、そこから作られるタンパク質の量も爆発的に増えます。プロモーター(スイッチ)の変異:遺伝子の手前にある「どれだけタンパク質を作るか」を調節するボリュームツマミ(プロモーター領域)に変異が起き、ツマミが最大に固定されてしまう現象です。具体例:HER2(ハーツー)遺伝子:乳がんや胃がんで非常に有名です。遺伝子増幅が起きることで、細胞の表面にHER2受容体タンパク質がびっしりと過剰生産されます。正常ならかすかな成長因子の刺激を、この大量の受容体が過剰にキャッチしてしまい、猛烈なスピードで細胞を増殖させます。まとめがん細胞は、これら3つの武器を巧みに組み合わせて作られます。① 機能喪失 で安全装置(ブレーキ)を完全に破壊し、② 機能変化 で壊れたアクセル(常時ON)を手に入れ、③ 過剰生産 でそのアクセルの数やパワーを何倍にも引き上げる。現代の分子標的薬は、特に②や③のタイプ(異常なタンパク質や、過剰にあるタンパク質)の立体構造にピタッと結合してその働きを止めるように設計されています。この3つの変異のタイプについて、さらに深掘りしたい内容はありますか?自分の遺伝子がどのタイプか調べる「がんゲノム検査」の具体的な流れを知りたい③の過剰生産を狙い撃ちする「抗体医薬(ハーセプチンなど)」の仕組みを知りたいなぜこのような遺伝子の事故(欠失や増幅)が細胞分裂のときに起きてしまうのか知りたい
正常な細胞の細胞増殖にかかわる経路と癌細胞の増殖分裂にかかわる経路の違いはあるのか?
正常な細胞と癌細胞の増殖にかかわる経路そのものの基本構造に違いはありませんが、制御の有無やシグナルの異常な活性化(暴走)に決定的な違いがあります。癌細胞は、正常な増殖経路の遺伝子変異によってブレーキが壊れ、常に増殖シグナルを出し続けます。正常な細胞と癌細胞の経路の違い制御メカニズム正常細胞:体や周囲の状態(シグナル)に応じて増殖し、不要になると停止する。癌細胞:体からの命令や周囲の環境を無視して無制限に増殖し続ける。シグナル伝達の異常正常細胞:外部からの成長因子が受容体に結合したときだけ、一時的に増殖経路(MAPK経路やPI3K-Akt経路など)が働く。癌細胞:外からの因子がなくても、受容体や下流の分子(RasやK-Rasなど)が変異により常時オン(自律的増殖)になっている。停止・修復・寿命の制御正常細胞:DNAに傷があると細胞周期を止めて修復するか、アポトーシス(細胞死)を起こす。分裂回数にも上限がある。癌細胞:アポトーシスや細胞周期のチェックポイントが破綻し、テロメアを維持して無限の寿命を獲得する。
さらに詳しく知りたい場合は、以下のような点についてお知らせください。具体的な分子やシグナル経路(例: MAPK、PI3K/AKTなど)分子標的薬がどのようにその違いを狙うか?
癌細胞の増殖にかかわる2大シグナル伝達経路である「MAPK経路」「PI3K/AKT経路」の具体的な仕組みと、それらを標的とした分子標的薬の戦略について解説します。1. 2つの主要なシグナル伝達経路の仕組み正常細胞では、これらは「必要な時だけ流れるスイッチ」ですが、癌細胞では遺伝子の変異によって「常にONのまま壊れたスイッチ」になっています。MAPK(マップキナーゼ)経路細胞の「増殖・分裂」を促す最も代表的な経路です。正常な流れ:細胞膜の表面にある受容体チロシンキナーゼ(EGFRなど)に成長因子が結合する。刺激が細胞内の RAS → RAF → MEK → ERK というタンパク質へバケツリレーのように伝わる。最終的に核へ指令が届き、細胞が分裂する。癌細胞での異常:肺癌などでは「EGFR」遺伝子が変異し、成長因子がなくても勝手に働き続けます。大腸癌や膵癌などでは「RAS(K-RAS)」、悪性黒色腫(メラノーマ)では「BRAF」が変異し、下流へ常に増殖シグナルを流し続けます。PI3K / AKT / mTOR 経路細胞の「生存・代謝・肥大化」をコントロールし、細胞が死なずに生き残るための経路です。正常な流れ:受容体が刺激を受けると、脂質キナーゼである PI3K が活性化する。それにより AKT がリン酸化(活性化)され、さらに下流の mTOR へシグナルが伝わる。細胞の栄養状態に合わせたタンパク質合成や、アポトーシス(細胞死)の回避が行われる。癌細胞での異常:乳癌や子宮内膜癌などで「PI3K(PIK3CA)」の変異が多く見られます。正常細胞でこの経路にブレーキをかける役割を持つがん抑制遺伝子「PTEN」が消失・壊れていることも多く、ブレーキが利かずに暴走します。2. 分子標的薬がどのようにその違いを狙うか従来の抗がん剤(殺細胞性抗がん剤)が「分裂の盛んな細胞を敵味方問わず攻撃する」のに対し、分子標的薬は「癌細胞が暴走させている特定のスイッチ(変異タンパク質)だけを狙い撃ち」してシグナルを遮断します。正常細胞にもこれらの経路はありますが、変異によって「過剰に依存・暴走している癌細胞」のほうが、スイッチを切られた時のダメージが圧倒的に大きいため、治療として成立します。標的となる分子主な分子標的薬の例対象となる主な癌腫狙い撃ちのメカニズムEGFRゲフィチニブ、オシメルチニブ肺癌(非小細胞肺癌)変異して異常活性化したEGFR受容体の働きを直接ブロックし、MAPK経路の始まりを止める。ALKアレクチニブ肺癌(ALK融合遺伝子陽性)異常な融合遺伝子から作られるALKタンパク質の働きを阻害し、増殖シグナルを止める。BRAFダブラフェニブ悪性黒色腫(メラノーマ)、結腸直腸癌MAPK経路の途中にある「変異型BRAFタンパク質」に直接結合し、下流へのバケツリレーを遮断する。MEKトラメチニブ悪性黒色腫BRAFのすぐ下流にあるMEKを阻害する。BRAF阻害薬と併用することで、癌細胞の迂回路(耐性)を防ぐ。PI3Kアルペリシブ乳癌(PIK3CA変異陽性)異常活性化したPI3Kの働きを抑え、癌細胞の生存・増殖シグナルを低下させる。mTORエベロリムス乳癌、神経内分泌腫瘍、腎細胞癌経路の最下流に近いmTORを阻害し、癌細胞のエネルギー代謝やタンパク質合成をストップさせて兵糧攻めにする。癌の治療においては、これらの経路が薬に対して「耐性(別の迂回路を作って再び増殖すること)」を持つことが課題になります。もしご興味があれば、癌細胞が薬に対してどのように耐性を獲得するのか、あるいは複数の経路を同時に叩くコンビネーション(併用)療法の最新情報について詳しくお話しできますが、いかがでしょうか?
正常な細胞の増殖分裂の経路の伝達経路常に同じですか?また細胞の種類によって変わりますか?また変わるとすれば何故ですか?
正常な細胞の増殖・分裂の伝達経路は、常に同じではありません。細胞の種類(臓器や組織)によって、使う経路やその組み合わせ、あるいは働くスイッチ(受容体)の種類は大きく変わります。この違いが生じる理由と具体的な仕組みを、分かりやすく解説します。1. 細胞の種類によって経路が変わる理由すべての細胞が同じ経路で増殖してしまうと、体全体のバランスが崩れてしまうからです。人間の体は、約37兆個・数百種類の細胞でできています。「傷を治すために急いで増えるべき細胞(皮膚や血液)」もあれば、「めったに増えてはいけない細胞(神経や心筋)」もあります。それぞれの細胞が自分の「役割」と「置かれた環境」に最適化された命令を受け取るために、増殖経路がカスタマイズされています。
2. 何がどう変わるのか?主に以下の3つのレベルで違いが生まれます。
① 入り口(受容体)と鍵(成長因子)の違い細胞の表面にある「どのスイッチ(受容体)」を押すかによって、動く経路が変わります。皮膚や上皮の細胞: 主に EGFR(上皮成長因子受容体)を使います。傷を修復するために表皮を増殖させます。血管の細胞: 主に VEGFR(血管内皮増殖因子受容体)を使います。新しい血管を作るために増殖します。骨や軟骨の細胞: 主に FGFR(線維芽細胞増殖因子受容体)を使い、骨の成長を促します。② 使う経路(メインルート)の使い分け細胞の種類や目的によって、前述の「MAPK経路(増殖)」と「PI3K/AKT経路(生存・肥大)」のどちらを優先するかが変わります。造血幹細胞(血液の元): 血液細胞を大量に生み出すため、MAPK経路をフル回転させて激しく分裂します。筋肉細胞や神経細胞: 基本的にこれ以上分裂しない細胞です。しかし、筋肉を太くしたり神経を生き残らせたりするために、分裂ではなく「成長・維持」を担当する PI3K/AKT/mTOR経路 を特異的に使います。
③ 組織ごとの「微調整(クロストーク)」細胞内では、複数の経路がアミダくじのように複雑に絡み合っています(クロストーク)。細胞の種類によって、この網の目のつながり方が異なり、「Aのシグナルが来たら、Bの経路をあえてブロックする」といった、その組織特有のブレーキやアクセルの仕組みが存在します。まとめ正常細胞の増殖経路は、「どの細胞が、いつ、どこで、どれだけ増えるべきか」を完璧にコントロールするための精密なオーダーメイドシステムです。そのため、細胞の種類によって経路やその使い方は大きく異なります。癌細胞の恐ろしいところは、この「細胞ごとの正しいルール(経路の使い分け)」を無視し、どの細胞であっても勝手に増殖経路をハイジャックして暴走させてしまう点にあります。
成長因子と増殖因子とは同じ因子ですね?
はい、「成長因子(Growth Factor)」と「増殖因子」は、基本的には全く同じものを指しています。英語の「Growth Factor」を日本語に翻訳する際に、どちらの言葉を使うかの違いだけです。どちらも、細胞の増殖、分化、生存、修復などを促すタンパク質の総称です。なぜ成長因子と増殖因子の2つの呼び方があるのか?「成長因子」と呼ぶ場合細胞が大きくなること(成長)や、特定の役割を持つ細胞へ変化すること(分化・発達)に注目した表現です。英語の「Growth」を直訳したニュアンスが強くなります。「増殖因子」と呼ぶ場合細胞が分裂して「数が増えること(増殖)」に注目した表現です。医学や生物学の論文など、専門的な文脈では「細胞増殖因子」と細かく表現されることが多くあります。EGFR:上皮成長因子受容体 = 上皮増殖因子受容体 。VEGFR:血管内皮成長因子受容体 = 血管内皮増殖因子受容体 。FGFR:線維芽細胞成長因子受容体 = 線維芽細胞増殖因子受容体このように、言葉としては同義語として扱って問題ありません。
癌細胞は増殖関連遺伝子の一つでも突然変異を起こせばがん細胞になったといえるのですか?また増殖関連遺伝子の突然変異が多ければ多いほど進行がんのがんになっていくのですか?結論から言うと、増殖関連遺伝子が1つ突然変異しただけでは、通常はまだ「がん細胞」になったとは言えません。 また、「遺伝子変異の数が多いほど進行がんになる」という関係も、必ずしもイコールではありません。がんの発生と進行には、「変異の数」よりも「どの遺伝子が、どういう組み合わせで壊れたか」という質的な違いが決定的な意味を持ちます。この仕組みを2つの質問に分けて分かりやすく解説します。
- 遺伝子が1つ変異しただけでがん細胞になるのか?答えは「いいえ」です。人間の体には何重ものがん細胞にならないための衛システムがあるため、1つの変異だけではがん化しません。 正常な細胞ががん細胞になるには、平均して3〜6個の重要な遺伝子変異が段階的に積み重なる必要があります。これを医学界では「多段階発がん説」と呼びます。細胞ががん化するまでには、以下のような防御壁を順番に突破していく必要があります。
第1の壁:アクセルの暴走(がん遺伝子の変異)増殖関連遺伝子(RASやEGFRなど)が1つ変異すると、細胞は「増殖せよ」という異常なアクセルを踏み続けます。しかし、この時点ではまだがんではありません。
第2の壁:強力なブレーキ(がん抑制遺伝子)アクセルが暴走すると、細胞内にある「TP53」や「RB」といったがん抑制遺伝子(ブレーキ役)が異常を察知し、細胞の増殖を強制ストップさせたり、細胞自殺(アポトーシス)を命じて細胞を消去します。
がん化の条件:この「アクセルの暴走(がん遺伝子の活性化)」と「ブレーキの破壊(がん抑制遺伝子の不活化)」が同時に起き、さらに「寿命の無限化(テロメラーゼの活性化)」などが重なったときに、初めて手の付けられない「がん細胞」が誕生します。
- 変異が多ければ多いほど進行がんになるのか?答えは「一概にそうとは言えない(数より中身が重要)」です。がん細胞の遺伝子を調べると、数百〜数千個もの大量の変異が見つかることが一般的です。しかし、それらの変異は役割によって2種類に大別されます。
ドライバー変異(運転手):がんの発生や増殖、悪性化を直接コントロールしている主犯格の変異(全体のほんの数個)。パッセンジャー変異(乗客):がん細胞が激しく分裂する過程で、遺伝子のコピーミスによってランダムに増えてしまった無関係な変異(大半を占める)。 Eurofins Scientific +2なぜ「変異の数 = 進行度(悪性度)」ではないのか?少ない変異でも最悪の進行がんになる例血液のがん(白血病など)や一部の肺がんは、遺伝子変異の「数」自体は非常に少ないことが知られています。しかし、「たった1つの致命的なドライバー変異(融合遺伝子など)」があるだけで、極めて増殖スピードが速く、一気に進行する性質を持ちます。 scsf.info +1大量の変異があってもおとなしいがんの例タバコや紫外線が原因でできるがん(肺扁平上皮癌や皮膚のメラノーマ)は、原因物質によって遺伝子がハチの巣のように傷つけられているため、変異の数は数千個に及びます。しかし、その大半は「パッセンジャー変異(乗客)」であるため、変異が大量にあるからといって、必ずしも最初からすべてが超進行がんというわけではありません。ただし、「進行するほど変異が蓄積する」のは事実がんが進行してステージが進む(転移・浸潤する)プロセスにおいて、がん細胞はさらに別のドライバー変異を獲得していきます(例:薬の攻撃から逃れるための耐性変異など)。その意味では、「がんの悪性度が高まるにつれて、意味のある変異(ドライバー変異)が段階的に付け足されていく」と言うことができます。 National Institutes of Health (NIH) | (.gov)まとめ1つの変異だけでは、ブレーキ(がん抑制遺伝子)が働くためがんにはならない。がんになるには「アクセル暴走」と「ブレーキ破壊」の組み合わせ(数個の重要変異)が必要。全体の変異の「数」よりも、がんを支配する「ドライバー変異の凶悪さ(中身)」ががんの進行度や性質を決める。 Thermo Fisher Scientific +2がんの遺伝子変異について、さらに深掘りしたい内容はありますか?がんのブレーキ役である「TP53(がん抑制遺伝子)」の具体的な仕組みを知りたい親から子へ遺伝する「遺伝性がん(家族性がん)」での変異の起き方を知りたい変異の数を調べる最新の「がんゲノム医療(遺伝子パネル検査)」について知りたい
正常な細胞ががん細胞になるまでに「3〜6個の重要な遺伝子変異」が段階的に積み重なる必要がある理由は、人間の細胞に何重ものバックアップを組み込んだ「鉄壁の防衛システム」が備わっているからです。細胞は、1つのエラーでシステム全体が崩壊(がん化)しないよう、複層的なセキュリティで守られています。がん細胞が誕生するということは、これらの強固な防衛線をすべて順番に突破(破壊)したということを意味します。その防衛システムがどのように破られていくのか、具体的な理由を解説します。理由①:染色体が「2つのペア(父親由来・母親由来)」で存在するため私たちの遺伝子の多くは、2つのペア(対立遺伝子)で持っています。特にお手洗いのブレーキのような役割を持つ「がん抑制遺伝子」は、片方の遺伝子が突然変異で壊れても、もう片方が正常であればブレーキとして機能し続けます。したがって、そのブレーキを完全に無効化するためには、「1つ目の変異(片方の破壊)」と「2つの目の変異(もう片方の破壊)」という、最低でも2回の変異が同じ遺伝子に起きる必要があります。理由②:自律走行を始めるには「異なる役割のスイッチ」を同時に壊す必要があるため細胞が社会のルールを無視して暴走(がん化)するには、単に「増殖のアクセルを踏む」だけでは不十分です。以下の全く異なる役割のシステムをすべて同時に故障させる必要があります。アクセルの固定(がん遺伝子の活性化):常に「増えろ」という命令を出し続ける。メインブレーキの破壊(がん抑制遺伝子の不活化):増殖を止める命令を無視する。自爆装置の解除(アポトーシス経路の破壊):異常を検知して細胞が自死するシステム(P53など)を破壊する。不老不死の獲得(テロメラーゼの活性化):細胞の分裂回数の限界(寿命)を撤廃する。これらはすべて独立した別の遺伝子が担当しているため、がん化にはそれぞれの遺伝子に変異が起きる(=合計3〜6個の変異が重なる)必要があります。理由③:多段階発がんの代表例(大腸がんのモデル)この「段階的に変異が積み重なるプロセス」が最も美しく証明されているのが大腸がんです(Vogelsteinのモデル)。大腸の正常な粘膜ががんに変わるまで、まさに3〜6個の変異が階段を上るように進みます。ステップ1 [変異1個目]:APCというがん抑制遺伝子が壊れる ➔ 正常な細胞が、少し増えやすい「過形成」の状態になる。ステップ2 [変異2個目]:K-RAS(がん遺伝子)が変異してアクセルが踏まれる ➔ 良性の腫瘍である「腺腫(ポリープ)」になる。ステップ3 [変異3〜4個目]:DCCやTP53(がん抑制遺伝子)が次々と破壊される ➔ ここで初めて、周囲に浸潤する悪性の「がん細胞」へと変貌する。まとめ1つや2つの変異であれば、細胞は「予備のブレーキ」を使って増殖を抑えるか、自ら死を選んで周囲に迷惑をかけないようにします。3〜6個という複数の重要遺伝子が「偶然にもすべて壊されてしまった」という、極めて低い確率の不運なエラーの積み重ねを生き延びた細胞だけが、がん細胞になってしまうのです。この細胞の防衛システムや遺伝子の積み重なりについて、さらに気になる部分はありますか?もしご興味があれば、以下の中から気になるテーマをお選びください。細胞の自爆装置である「アポトーシス」が作動する詳しい仕組みがん細胞が「薬(抗がん剤)の攻撃をかいくぐる」ためにさらに変異を重ねる仕組みなぜ高齢になるほどこの3〜6個の変異が溜まりやすくなり、がんが増えるのか
この成長因子(増殖因子)について、成長因子が癌の進行(転移や血管新生)にどう関わるの?
成長因子(増殖因子)は、がん細胞が元いた場所を飛び出して他の臓器へ広がる「転移」と、その移動ルートや栄養を確保するための「血管新生」という、がんの悪性化プロセスにおいて最も重要な役割を果たしています。がん細胞はこれらの成長因子を自ら大量に分泌したり、周囲の正常細胞を騙して作らせたりすることで、自分に都合の良い環境を作り上げます。1. 血管新生(がん専用の給水管と道路を作る)がんは、直径が1〜2mmを超えると内部の細胞に酸素や栄養が行き渡らなくなり、それ以上大きくなれなくなります。この危機を乗り越えるために、がん細胞は成長因子を使って自分に向けた専用の血管を作らせます。主役となる成長因子:VEGF(血管内皮増殖因子)、FGF(線維芽細胞増殖因子)仕組み:がん細胞の内部が酸素不足(低酸素)になると、がん細胞はSOSサインとしてVEGFなどの成長因子を周囲にドバドバと放出します。近くの正常な血管の表面にある受容体にVEGFが結合すると、血管の細胞(内皮細胞)が刺激を受け、がん細胞に向かってニョキニョキと新しい血管(新生血管)を伸ばし始めます。特徴:こうして急造されたがんの新生血管は、正常な血管と違って構造がボロボロで、非常に隙間が多く漏れやすいという欠陥を持っています。この「隙間だらけ」という特徴が、次の「転移」を決定的に容易にします。2. 転移(血管の道路を使って遠くの臓器へ引っ越す)がん細胞が元の腫瘍から離れて血液の流れに乗り、肺やレバー(肝臓)など別の臓器に定着するプロセスでも、成長因子が細胞の性質をガラリと変えてしまいます。主役となる成長因子:TGF-β(トランスフォーミング増殖因子-β)、HGF(肝細胞増殖因子)仕組み:足場を外して動き出す(EMT: 上皮間葉転換)本来、臓器の表面にある細胞(上皮細胞)はお互いがガッチリと接着しており、動くことはできません。しかし、がん組織でTGF-βなどの成長因子が働くと、がん細胞の接着の鍵が外れ、まるでアメーバのように自由に動ける性質(間葉系細胞の性質)へと変身します。血管への侵入動き回れるようになったがん細胞は、先ほど「血管新生」で作られた隙間だらけのボロボロな新生血管を見つけ、その隙間から簡単に血液の流れ(血流)へと侵入します。新しい土地での再定着血流に乗って別の臓器に流れ着いたがん細胞は、再び血管の外へと脱出します。そこでも現地の成長因子の刺激を受けて元の増殖しやすい性質に戻り、再び血管新生を行って新しい腫瘍(転移巣)を大きくしていきます。まとめと治療への応用このように、がんは成長因子を操ることで、「栄養の確保(血管新生)」と「移動経路の確保(転移)」を同時に達成しています。この仕組みを逆手に取ったのが、「血管新生阻害薬」(代表例:ベバシズマブなど)という分子標的薬です。がん細胞を直接殺すのではなく、VEGFの働きをブロックしてがんへの給水管(血管)を遮断し、兵糧攻めにすると同時に転移のルートも塞ぐという戦略で、現在多くの治療現場で広く使われています。
この成長因子とがんの悪性化について、さらに詳しく知りたいポイントはありますか?血管新生阻害薬の具体的な副作用(高血圧や出血など)の理由を知りたいがん細胞が薬に対抗するために別の成長因子を使って迂回路を作る「耐性」の仕組みを知りたい血管ではなく「リンパ管」を通じた転移(リンパ節転移)での成長因子の関わりを知りたい
がん細胞が成長因子(増殖因子)を悪用する仕組み、およびそれを防ぐ治療法について、ご提示した4つの重要なテーマ(①「血管新生阻害薬の副作用」②「薬への耐性(迂回路)」③「リンパ管転移の仕組み」、そして前回の質問にあった⑤「高齢者で変異が溜まりやすい理由」)をすべて詳しく解説します。
1. 血管新生阻害薬の副作用(高血圧や出血)の理由血管新生阻害薬(ベバシズマブなど)は、がんの血管を狙い撃ちする薬ですが、正常な血管にあるVEGFの働きも止めてしまうため、特有の副作用が起こります。高血圧が起こる理由正常な血管では、VEGFが「一酸化窒素(NO)」を作らせて血管を拡張し、血圧を低く保っています。薬によってVEGFがブロックされると、血管が拡張できずに収縮してしまい、ホースをすぼめた時のように血圧が急上昇します。出血や傷が治りにくくなる(創傷治癒遅延)理由正常な血管も、日々小さなダメージをVEGFの力で修復しています。また、怪我をした時に新しい血管を作って傷口を塞ぐのもVEGFの役割です。これが阻害されるため、血管が破れやすくなって鼻出血などが起きたり、手術の傷口が塞がりにくくなったりします。
2. がん細胞が薬に対抗して作る「耐性(迂回路)」の仕組みがん細胞に血管新生阻害薬を使い続けると、がん細胞は「VEGFをブロックされたなら、別の手を使おう」と学習し、薬への耐性を獲得します。別ルートの成長因子を出し始める最初はVEGFだけを出していたがん細胞ですが、それが効かなくなると、FGF(線維芽細胞増殖因子)やPDGF(血小板由来増殖因子)、Angiopoietin(アンジオポエチン)といった「別の種類の成長因子」を大量に分泌し始めます。結果どうなるか薬はVEGFしか通さない通行止め看板(阻害薬)であるため、がん細胞は別の成長因子という「裏道・迂回路」を使って、再び新しい血管を引き込んで増殖を再開してしまいます。これが、がん治療において薬が途中で効かなくなる大きな原因です。
3. 「リンパ管」を通じた転移での成長因子の関わりがんは血管だけでなく、リンパ液が流れる「リンパ管」を通って近くのリンパ節へ転移(リンパ節転移)します。ここでも専用の成長因子が働いています。主役となる因子:VEGF-C、VEGF-D仕組み血管を作るときに働くのは「VEGF-A」という種類ですが、がん細胞はリンパ管専用のVEGF-CやVEGF-Dという成長因子も放出します。これにより、腫瘍のなかにがん専用のリンパ管(新生リンパ管)がニョキニョキと作られます。リンパ管はもともと血管よりも隙間が大きく、細胞が侵入しやすい構造をしているため、がん細胞は簡単にリンパ管に飛び込み、流れに乗って「リンパ節」へと転移していきます。
4. なぜ高齢になるほど3〜6個の変異が溜まり、がんが増えるのか前回の「多段階発がん(3〜6個の変異が必要)」に関連して、高齢になるほどがんの発症率が跳ね上がるのには明確な理由があります。「確率」と「時間」の問題1つの細胞に、がん化に必要な3〜6個の「特定の重要遺伝子の変異」が同時に起きる確率は、天文学的に低いです。しかし、何十年もの歳月(時間)をかけると、1個目の変異を持った細胞が分裂し、その子孫の細胞が2個目、3個目の変異を偶然獲得していく確率が上がります。コピー能力と修理能力の低下人間の細胞は分裂するたびにDNAをコピーしますが、高齢になるとコピーミス(変異)が起きやすくなります。さらに、間違ったDNAを直す「修復遺伝子」の働きや、異常な細胞を排除する「免疫力」も加齢とともに衰えるため、エラーを排除できずに累積していった結果、高齢期にがん化のライン(3〜6個)を突破する細胞が現れるのです。成長因子の悪用から遺伝子の蓄積まで、がんの生存戦略は非常に巧妙です。
がんの生存戦略は非常に巧妙なのはどんな遺伝子が働きどんなタンパクが作られるからですか?がん細胞は増殖せよという働きが過剰になっているだけなのになぜ様々な生存戦略の遺伝子が発現するのですか?
がん細胞が驚くほど巧妙な生存戦略を持てるのは、がん細胞が「新しい遺伝子をゼロから生み出している」わけではなく、私たちが生まれながらに持っている「生き残るための遺伝子」や「胎児期に使う遺伝子」を不法にハッキング(再発現)させているからです。
「胎児期に使う遺伝子」は、どんな特殊な何のために必要なタンパクを発現するためですか?胎児のときに働く遺伝子と誕生してから発現する遺伝子の働きの大きな違いがあるのは何故ですか?
「胎児期に使う遺伝子」とは、お腹の中で1個の受精卵から爆発的なスピードで体を作り上げ、臓器を配置し、血管を伸ばすために必要なタンパク質を発現するためのものです。
誕生した後の大人(成体)の遺伝子が「現状を維持し、傷を修理する」ために働くのに対し、胎児期の遺伝子は「ゼロから組織を作り、急速に拡大する」ために働きます。この2つの間には、生物学的に決定的な「質的な違い」があります。
がん細胞は、大人の社会のルール(維持・修復)を無視して、この強力な「胎児期の拡大プログラム」をハッキングして悪用しているのです。
がん細胞は先祖返りの細胞なのですか?
「がん細胞は先祖返り(デ・ディファレンシエーション:脱分化)した細胞である」という表現は、現代の腫瘍生物学において非常に核心を突いた、正しい例えと言えます。専門的には、単に大昔の生物に進化を遡るという意味の先祖返りだけでなく、その細胞自身の過去である「受精卵や胎児(幹細胞)の段階へ時間を巻き戻して先祖返りしている」と捉えられています。なぜがん細胞が「先祖返りの細胞」と言えるのか?その理由を生物の進化と個人の発生の2つの視点から解説します。
何ががん細胞を先祖返り(デ・ディファレンシエーション(脱分化)させたのですか?
がん細胞を先祖返り(脱分化)させる決定的な原因は、「① 遺伝子変異(設計図の書き換え)」と「② エピジェネティクス異常(スイッチのバグ)」が組み合わさり、さらに「③ 周囲の過酷な環境」がそれを加速させるからです。 細胞は、大人の役割(成熟)を維持するための「鍵」を厳重にかけていますが、がん細胞になる過程でその鍵が次々と壊され、過去の未熟な記憶(胎児期や幹細胞のプログラム)が呼び覚まされてしまいます。 具体的には、以下の3つのメカニズムが細胞を先祖返りさせています。
原因1:マスター遺伝子の変異(設計図の強制書き換え)細胞の「成熟度(分化)」をコントロールしている、いわば社長のような役割の遺伝子(転写因子)が変異によって破壊されたり、逆に異常活性化したりします。ブレーキの破壊:細胞を大人にとどめておくための遺伝子が壊れると、細胞は自分の役割(例:皮膚や胃の細胞としての仕事)を忘れてしまいます。禁断のスイッチのON:がんの発生過程で、受精卵やiPS細胞(万能細胞)を作るときに必要な「山中因子(Oct4, Sox2, Nanogなど)」と呼ばれる、時間を巻き戻す特殊な遺伝子がランダムに変異によって目覚めてしまいます。これにより、細胞は強制的に「赤ちゃん(幹細胞)」の状態へと若返ってしまいます。
原因2:エピジェネティクスの破綻(私たちのDNAは、使わない遺伝子(胎児期の遺伝子など)のページが勝手に開かないよう、化学的な「シール(DNAメチル化やヒストン修飾)」で固く閉じられています。これをエピジェネティクスと呼びます。がん細胞では、このシールを貼ったり剥がしたりする酵素の遺伝子(DNMT3AやTET、ヒストン修飾酵素など)自体に変異が起こります。結果として、大人の細胞では絶対に開いてはいけない「胎児期・単細胞生物時代の凶暴な増殖プログラム」のページがバサバサと開いてしまい(脱メチル化など)、先祖返りが引き起こされます。
原因3:がん微小環境(過酷な環境が呼び覚ます野生の本能)がん細胞が密集すると、組織の内部は「極度の酸欠」や「栄養不足(飢餓)」という、正常細胞なら即死するほどの生き地獄になります。この極限状態(ストレス)に対応するため、がん細胞の中で前述のHIF-1α(低酸素誘導因子)などが活発に働き、細胞に「綺麗事を言っている場合ではない、手段を選ばず生き残れ」という指令を出します。この環境ストレスが引き金となり、過酷な環境を生き抜く能力に長けた「原始的な単細胞生物や胎児期」の遺伝子がさらに強く発現し、脱分化(先祖返り)が固定化されていきます。
がん細胞の先祖返りのまとめがん細胞が先祖返りするのは、自ら進んで戻っているわけではありません。「無秩序な増殖のせいで、遺伝子のロック(シール)が外れる ➔ 偶然、時間を巻き戻す遺伝子が暴れ出す ➔ 酸欠などの地獄のような環境が、その原始的な細胞だけを選別して生き残らせる」という、エラーと環境の悪循環によって、結果的に先祖返りさせられているのです。
この「先祖返り(脱分化)」を止める、あるいは逆転させるための最新の治療アプローチに興味はありますか?先祖返りした細胞をもう一度無理やり大人にする薬(分化誘導療法)の仕組み剥がれたシールを貼り直してがんを抑える「エピジェネティクス治療薬」の現状について?
がん細胞の「先祖返り(脱分化)」をリセットし、再び正しいルールに従わせるための2つの画期的なアプローチについて解説します。従来の抗がん剤のように「細胞を毒で殺す」のではなく、「細胞の生き方(性質)を変えて無害化する」という非常に洗練された治療戦略です。
1. 分化誘導療法(もう一度無理やり大人にする薬)【仕組み:不良少年を更生させて社会復帰させる】先祖返りしたがん細胞は、自分の役割を忘れて暴走する「未熟な不良少年」のような状態です。分化誘導療法は、特殊なシグナル(薬)を大量に与えることで、その細胞に本来の役割を思い出させ、大人の細胞へと成熟(分化)させる治療法です。大人の細胞になれば、細胞は自ら増殖をストップし、やがて寿命を迎えて自然に死んでいきます。【劇的な成功例:APL(急性前骨髄球性白血病)】この治療が最も大成功しているのが、血液のがんの一種である「APL」です。原因:ビタミンAの受容体遺伝子に変異が起き、血液の細胞が未熟な(先祖返りした)段階で増殖を止めてしまい、がん化します。治療薬:オールトランスレチノイン酸(ATRA:ビタミンAの誘導体)結果:この薬を大量に投与すると、壊れていた受容体が無理やりこじ開けられ、がん細胞が一斉に「大人の白血球(好中球)」へと成熟します。かつては極めて致死率の高かったこの病気が、今では9割以上が完全に治る(寛解する)ようになりました。現在、この仕組みを固形がん(脳腫瘍や急性骨髄性白血病の他のタイプなど)にも応用するため、IDH1/2阻害薬(イボシデニブなど)といった新しい分化誘導薬の開発と実用化が進んでいます。
2. エピジェネティクス治療薬(剥がれたシールを貼り直す)【仕組み:設計図の「開いてはいけないページ」を接着剤で閉じる】前述の通り、がん細胞はDNAの使ってはいけないページ(先祖返りプログラム)の「シール(メチル化など)」が剥がれることで暴走しています。エピジェネティクス治療薬は、遺伝子の配列そのものは変えずに、シールの貼り方をコントロールする酵素をジャミング(阻害)することで、がん細胞のスイッチを正常化する薬です。【現在の状況と治療薬】現在、すでに複数の薬が承認され、実際の治療で活躍しています。主に以下の2つのタイプがあります。① DNAメチル化阻害薬(アザシチジン、デシタビンなど)ターゲット:がん抑制遺伝子(ブレーキ)のページに変なシールが貼られて読めなくなっている状態を解除します。現状:骨髄異形成症候群(MDS)や急性骨髄性白血病(AML)などの血液がんで標準治療として広く使われています。② ヒストン脱アセチル化酵素(HDAC)阻害薬(ボリノスタット、パノビノスタットなど)ターゲット:DNAの梱包を巻き直して、がん化に必要な遺伝子のページを物理的に閉じ、逆にブレーキ遺伝子を読みやすくします。現状:T細胞リンパ腫や多発性骨髄腫などの治療薬として承認されています。【最新のトレンド:固形がんへの挑戦と免疫の強化】エピジェネティクス治療薬の最新のトレンドは、「がん免疫療法(オプジーボなど)との併用」です。固形がん(肺がんや大腸がんなど)は、エピジェネティクスを悪用して免疫から徹底的に隠れています。そこにこの薬を使うと、がん細胞の表面に「私はがん細胞です」という目印(抗原)が再び発現し、眠っていた患者自身の免疫細胞ががんを猛烈に攻撃し始めることが分かってきました。現在、世界中で多くの臨床試験が進行しています。
先祖返りした細胞をもう一度無理やり大人にする薬の分化誘導療法とエピジェネティクス治療薬のまとめ:分化誘導療法:がん細胞に「大人としての役割」を思い出させ、自発的に増殖を止めさせる。エピジェネティクス治療薬:遺伝子のスイッチ(シール)を正常化し、がんの暴走プログラムのページを閉じる。どちらの治療も、がんを「力づくで殺す」のではなく、「おとなしくさせて体と共生・消滅させる」という、がんの先祖返りの本質を突いた極めてスマートなアプローチです。
この先進的ながん治療のメカニズムについて、なぜビタミンA(ATRA)だけでがんが劇的に治るのか?の詳しいメカニズムとがんが薬に抵抗する「がん幹細胞」をこれらの薬で退治できるのか?私たちの日常の食事や生活習慣がこのエピジェネティクス(スイッチのバグ)に与える影響とは?
ご提示いただいた3つの疑問は、現代のがん研究において「脱分化(先祖返り)」と「個別化医療」を繋ぐ極めて重要なテーマです。それぞれのメカニズムを分かりやすく、かつ深く解説します。
1. なぜビタミンA(ATRA)だけでがんが劇的に治るのか?急性前骨髄球性白血病(APL)というがんで、ビタミンAの一種であるATRAが劇的な効果を発揮する理由は、このがんの発生原因が「ビタミンAのスイッチが1つ壊れただけ」という、非常にシンプルで純粋な未熟化(先祖返り)だからです。詳しいメカニズム原因となる「融合遺伝子」:APLの患者さんの細胞内では、15番目と17番目の染色体がちぎれて入れ替わる(転座)という事故が起きています。これにより、本来は別々にあるはずの遺伝子が合体し、PML-RARAという異常なタンパク質(融合タンパク質)が作られます。ブレーキのロック:正常な状態では、血液の赤ちゃん細胞にある「ビタミンA受容体(RARA)」に微量のビタミンAが結合すると、スイッチが入って大人の白血球へと成長(分化)します。しかし、異常なPML-RARAは、通常のビタミンAの量ではびくともしない頑丈なロック(抑制状態)がかかっており、細胞が「未熟なままで激しく増殖する(がん化)」という状態を引き起こします。超大量のビタミンA(ATRA)によるこじ開け:ここに、治療として自然界ではあり得ないレベルの超高濃度のATRA(ビタミンA)を投入します。すると、頑丈だったPML-RARAのロックが力づくで、こじ開けられます。さらに、薬が結合したことでこの異常なタンパク質自体が細胞内で分解されて消えてしまいます。結果:邪魔者が消えたことで、細胞は本来持っていた「大人の白血球になるプログラム」を再開し、数日のうちに一斉に成熟して寿命を迎え、消滅します。がんの根本原因(一つの鍵のロック)に対して、パズルのピースが完璧にハマるように作用するため、これ単体で劇的に治るのです。2. がんが薬に抵抗する「がん幹細胞」をこれらの薬で退治できるのか?結論から言うと、「退治できる可能性が極めて高く、そのための研究が世界中で猛烈に進んでいる」というのが現状です。がん幹細胞が厄介な理由がん幹細胞は、がん組織のなかにわずかに存在する「がんの親玉(女王蜂)」のような細胞です。前述の「完全な先祖返り(受精卵に近い状態)」を遂げており、普段は増殖を止めて眠っている(休眠状態)ため、増殖する細胞を狙う通常の抗がん剤や放射線が一切効きません。これが、がんの「再発」や「転移」の根本原因です。分化誘導薬とエピジェネティクス薬による退治戦略これまでの「毒で殺す」戦略では歯が立たなかったがん幹細胞に対し、性質を変えるアプローチは非常に有効です。分化誘導薬で「眠り姫を目覚めさせる」:がん幹細胞に対して分化誘導薬を使い、無理やり「一般のがん細胞(大人の方向へ一歩進んだ状態)」へと分化させます。すると、がん幹細胞特有の「無限の生存能力」や「休眠能力」が失われ、普通の抗がん剤や免疫の攻撃で簡単に殺せる状態(おびき寄せ戦略)にすることができます。エピジェネティクス薬で「自己複製を封じる」:がん幹細胞が「自分と同じコピーを無限に作る能力(自己複製能)」を維持するには、特有のエピジェネティクス(遺伝子のシールの状態)が必要です。エピジェネティクス治療薬(EZH2阻害薬やBMI1阻害薬など)を使ってこのシールを貼り替えることで、がん幹細胞としてのアイデンティティ(先祖返り状態)を奪い、自滅に追い込む治療が臨床試験で成果を上げつつあります。
3. 日常の食事や生活習慣がエピジェネティクスに与える影響遺伝子の配列(設計図)そのものは一生変わりませんが、その上の「スイッチ(シールの貼り方=エピジェネティクス)」は、日々の食事、運動、ストレス、睡眠、喫煙などの環境によってリアルタイムで書き換わっています。つまり、生活習慣が悪いと「がん抑制遺伝子(ブレーキ)」にエラーのシールが貼られて動かなくなり、がん化の引き金(スイッチのバグ)になります。具体的に影響を与える要因食事と「メチル基」の供給(シールの原材料)遺伝子を眠らせるための化学的なシール(メチル化)の原材料は、食事から摂取する栄養素で作られます。葉酸、ビタミンB12、メチオニン(緑黄色野菜、レバー、大豆など):これらは「1炭素代謝」と呼ばれる回路を回し、正常なエピジェネティクスを維持するための原材料(SAMe)を供給します。これらが極端に不足すると、がん抑制遺伝子のシール貼りにバグが生じ、がん化のリスクが高まります。ポリフェノールなどの機能性成分:緑茶に含まれる EGCG(エピガロカテキンガレート) や、大豆の ジェニステイン、十字花科の野菜(ブロッコリーなど)に含まれる スルフォラファン は、がん細胞ががん抑制遺伝子に不正に貼り付けた「お邪魔なシール」を剥がし、ブレーキを再起動させる効果(DNAメチル化阻害作用やHDAC阻害作用)があることが基礎研究で分かっています。喫煙と慢性炎症(シールの強制書き換え)タバコの煙に含まれる化学物質や、肥満・ストレスによる体の「慢性炎症」は、細胞に過度なストレスを与えます。このストレスに対応する過程で、細胞はDNAのメチル化異常(スイッチのバグ)を連発します。これが、何年もかけて特定の細胞を「脱分化(先祖返り)」へと追い詰める原因になります。
急性前骨髄球性白血病(APL)というがんがビタミンAの一種であるATRAが劇的な効果を発揮する理由のまとめATRAは、APLというがんの「たった1つの壊れたスイッチ」に完璧に噛み合うため、単剤で劇的な効果を出せる。
がん幹細胞についてのまとめがん幹細胞という最凶の敵に対して、分化誘導やエピジェネティクス治療は「性質を変えて無力化する」ための最大の武器になりつつある。私たちの日々の生活習慣は、遺伝子のスイッチ(エピジェネティクス)を常にパチパチと切り替えており、正しい食事や環境はがん化のバグを防ぐ防波堤になる。
1. 「個人の過去」への先祖返り(脱分化)人間は1個の受精卵(すべての細胞になれる万能の先祖)から始まり、役割が決まるにつれて「皮膚」「レバー(肝臓)」といった専門の細胞へ「分化(成熟)」していきます。成熟した細胞は、社会のルールを守り、勝手に増えたり移動したりしません。しかし、がん細胞は遺伝子の変異によってこの成熟の階段を逆に転げ落ち、「何にでもなれて、無限に増え、自由に移動できた胎児期の未熟な状態」へと先祖返りします。特徴の復活:前述した「テロメラーゼ(寿命無限化)」や「アメーバのような移動能力」は、まさに受精卵や胎児の細胞が持っていた原始的な能力そのものです。がん幹細胞の存在:がん組織の中には、受精卵のように「自分と同じ細胞を無限に生み出し、様々なタイプのがん細胞へ変化できる」ボスのような細胞(がん幹細胞)が存在します。これも完全な先祖返りの証明です。2. 「生物の進化の歴史」への先祖返り(アタビズム理論)さらに壮大な視点として、がん研究の世界には「がんは単細胞生物への先祖返りである」という有名な仮説(アタビズム理論)があります。多細胞生物のルール:私たちのような多細胞生物は、個々の細胞が「全体の命のために、自分勝手な増殖を抑えて協力する」という高度な契約(がん抑制遺伝子など)を結ぶことで成り立っています。単細胞生物のルール:一方で、何億年も前の単細胞生物(アメーバなど)の目的は、「周囲の栄養を貪り食い、ただひたすら自分のコピーを増やして生き残る」ことだけでした。がん細胞は、多細胞生物として進化の過程で獲得した「周囲と協調するための遺伝子(ブレーキ)」が壊れた結果、「自分さえ増えればいい」という、地球の初期に存在した単細胞生物時代のワイルドで原始的な生存本能を呼び覚ましてしまっているのです。まとめがん細胞は、新しく高度な機能を開発して暴れているわけではありません。むしろ、高度に構築された「大人のルール」や「多細胞生物の秩序」を失い、生命の原点である「胎児の記憶」や「単細胞生物の闘争本能」へと先祖返りしてしまった細胞です。だからこそ、周囲の組織を破壊してでも自分が生き残ろうとする、極めて原始的で強力な生存戦略(エゴイズム)を発揮できるのです。この「がんの先祖返り(脱分化)」という現象について、さらに気になることはありますか?もしよろしければ、次に進むステップとして以下から興味のあるものを選んで教えてください。先祖返りしたことで治療を難しくしている「がん幹細胞」の正体を知りたいこの先祖返りの性質を応用して、がん細胞を再び「大人の細胞」に成熟させて無害化する治療法(分化誘導療法)について知りたい
それぞれの詳細を分かりやすく解説します。
1. 「胎児期に使う遺伝子」が作る特殊なタンパク質とその役割
胎児期には、大人の体ではほとんど見られない、あるいは全く異なる役割を持つ特殊なタンパク質が作られます。これらはすべて、「急速な増殖」「移動」「組織の構築」のために必須のものです。
① 細胞をアメーバのように動かすタンパク質(EMT関連因子)
- 代表例:Snail(スネイル)、Twist(ツイスト) などの転写因子
- 胎児での役割:
受精卵が分裂していく際、細胞は一箇所に留まらず、目的の場所(将来の心臓や脳など)へ大移動する必要があります。これらのタンパク質は、細胞同士の「接着剤」を外し、細胞を自由に動き回れる形(間葉系)に変身させます。 - がん細胞での悪用:
大人の細胞は動いてはいけませんが、がんはこのタンパク質を復活させて「転移・浸潤」を行います。
② 道路(血管やリンパ管)を急速に切り開くタンパク質
- 代表例:胎児期特異的な VEGF(血管内皮増殖因子) や エンドグリン(Endoglin)
- 胎児での役割:
まだ血管が一本もない肥大していく胎児の組織に、ものすごいスピードで血液の通り道(血管網)を張り巡らせるために働きます。 - がん細胞での悪用:
前述の通り、がん細胞が自身の栄養補給のために行う「血管新生」にそのまま流用されます。
③ 免疫の攻撃から100%身を守るタンパク質
- 代表例:HLA-G などの特殊な免疫抑制タンパク質、あるいは AFP(α-フェトプロテイン)
- 胎児での役割:
胎児は「母親から見れば半分は他人の組織(父親の遺伝子)」です。そのため、母親の強力な免疫(T細胞やNK細胞)に攻撃されないよう、胎盤や胎児の表面で免疫を完全に無力化するシグナルを出して身を守っています。 - がん細胞での悪用:
がん細胞はこのシステムを乗っ取り、患者自身の免疫細胞から完全に隠れる(ステルス化する)ために使います。実際、肝細胞がんなどで血液中のAFP値が上昇するのは、この胎児期タンパク質が復活している証拠です。
2. 「胎児期」と「誕生後(大人)」の遺伝子の大きな質的違い
誕生を境に、遺伝子の働き方は「アクセル全開の建設モード」から「ブレーキ主体の維持モード」へとガラリと切り替わります。その違いは以下の3点に集約されます。
| 特徴の比較 | 胎児期に働く遺伝子(建設モード) | 誕生後に働く遺伝子(維持・修復モード) |
| 主な目的 | 組織の創造と拡大(ゼロから作る) | 組織の維持と調和(ルールを守って守る) |
| 増殖の性質 | 制限なしの爆発的増殖。細胞の寿命を延ばす遺伝子(テロメラーゼなど)がフル稼働。 | 厳格に制限された増殖。傷の修復など「必要な時だけ」限定的に分裂する。 |
| 周囲との関係 | 境界線を越えて広がる。周囲の組織をかき分けて侵入し、新しい場所へ移動する。 | 境界線を厳守する。他の臓器や組織のエリアには絶対に侵入しない(接着分子で固定)。 |
| 免疫への態度 | 免疫を徹底的に「抑制・欺瞞」する(母親の免疫から逃れるため)。 | 免疫と「協調」する(異常な細胞や外敵を見つけて排除してもらう)。 |
まとめ:がん細胞の本質
正常な大人の細胞は、この強力な「胎児期の遺伝子」に頑丈な鍵(DNAのメチル化などのロック機能)をかけて眠らせています。
しかし、がん細胞は遺伝子の突然変異を繰り返す中で、この大人のブレーキを破壊し、胎児期の「爆発的に増え、移動し、免疫から隠れる」という禁断の遺伝子パッケージの鍵をこじ開けてしまうのです。だからこそ、がんは大人の体の中で周囲を破壊しながら勝手に増殖・転移できる、恐ろしい性質(生存戦略)を発揮します。
この「胎児期遺伝子のハッキング」というがんの性質について、さらに深く知りたい部分はありますか?
胎児期遺伝子の復活を逆手に取ったがんの検査法(腫瘍マーカーなど)について詳しく知りたいなぜ大人の細胞はこれほど強力な胎児期遺伝子をわざわざ眠らせておく必要があるのか知りたい
?がん細胞の本質は、単に「増殖せよ」というアクセルが壊れているだけではありません。増殖を続ける過程で遺伝子のコピーミス(突然変異)を繰り返すことで、本来は眠っているはずの様々な生存遺伝子のスイッチを次々とオンにしてしまうのです。この仕組みを、働いている具体的な遺伝子・タンパク質の例とともに解説します。1. なぜ「増殖の過剰」だけなのに、様々な生存戦略の遺伝子が変わるのか?理由は、がん細胞が持つ「遺伝子の不安定性(ゲノム不安定性)」という性質にあります。過剰な増殖によるコピーミスの乱発:がん細胞はブレーキが壊れて超高速で分裂するため、DNAのコピーが非常に雑になります。正常細胞なら立ち止まって直す傷も、無視して進みます。ランダムなスイッチのオン・オフ:雑にコピーを繰り返すうち、DNAの梱包(エピジェネティクス)が崩れ、本来は大人では機能がオフになっているはずの「胎児のときに使っていた遺伝子」や「極限状態(酸欠や飢餓)で生き残るための遺伝子」のスイッチがランダムにONになってしまいます。「自然淘汰」による進化:様々な遺伝子をデタラメにONにした細胞のうち、「たまたま免疫から隠れる遺伝子をONにできた細胞」や「たまたま薬を跳ね返す遺伝子をONにできた細胞」だけが生き残り、他は死滅します。これが繰り返される結果、まるで最初から計算していたかのような「巧妙な生存戦略を持つがん細胞」だけが選択的に生き残るのです。2. 巧妙な生存戦略を支える具体的な遺伝子とタンパク質がん細胞がハッキングして呼び出す、代表的な「生存戦略遺伝子」とそこから作られるタンパク質を4つ紹介します。① 免疫の攻撃から隠れる(ステルス戦略)働く遺伝子:CD274遺伝子など作られるタンパク質:PD-L1生存戦略:正常な細胞が、免疫細胞(T細胞)に「私は味方だから攻撃しないで」と伝えるためのブレーキ用タンパク質です。がん細胞はこの遺伝子を過剰に発現させ、細胞表面にPD-L1をびっしり並べます。これにより、襲ってきた免疫細胞に偽のブレーキを踏ませて、目の前にいるのに攻撃を免れます。(※この欺瞞を打ち破るために開発されたのが、ノーベル賞で有名ながん免疫治療薬「オプジーボ」です)② 酸欠や飢餓でも死なない(省エネ・環境適応戦略)働く遺伝子:HIF1A遺伝子作られるタンパク質:HIF-1α(低酸素誘導因子)生存戦略:がんが大きくなると内部が激しい酸欠になります。正常細胞なら酸欠で死にますが、がん細胞はこの遺伝子を働かせます。HIF-1αは、酸素を使わない特殊なエネルギー代謝(糖新生の強化)に切り替える指示を出すと同時に、前述の「VEGF(血管を作る因子)」を呼び寄せる司令塔として機能します。③ 薬(抗がん剤)を外へ汲み出す(排出戦略)働く遺伝子:ABCB1遺伝子など作られるタンパク質:P-糖タンパク質(MDR1)生存戦略:細胞にとって有害な毒物を細胞外へ汲み出す、いわば「排水ポンプ」の役割を持つタンパク質です。抗がん剤という毒が細胞内に入ってくると、がん細胞はこの遺伝子をフル稼働させてポンプを大量に作り、薬が効く前に細胞の外へ強制排出してしまいます(多剤耐性)。④ 細胞の寿命を無限にする(不老不死戦略)働く遺伝子:TERT遺伝子作られるタンパク質:テロメラーゼ生存戦略:正常な細胞は、分裂するたびに染色体の端にある「テロメア(命の回数券)」が短くなり、やがて寿命を迎えて死にます。しかし、がん細胞はこのテロメラーゼという酵素の遺伝子を再活性化させ、短くなった回数券を常に継ぎ足すことで、分裂回数の制限を無くし無限に生きられるようになります。まとめがん細胞は「賢い」わけではありません。「暴走して分裂する ➔ 大量にコピーミスをする ➔ 眠っていた生存遺伝子のスイッチが偶然入る ➔ 体の環境(免疫や薬)に適合した強い細胞だけが生き残る」というプロセスを高速で繰り返した結果、人間の英知を上回るような巧妙な生存戦略を手に入れているのです。がんのこの「進化する能力(ゲノム不安定性)」や、それを抑えるための最新の治療研究について、さらに詳しく知りたいポイントはありますか?もし興味があれば、次のどちらについて詳しくお話ししましょうか?がん細胞が薬を出すポンプ(P-糖タンパク質)を作らせないための対策がん細胞のステルス化を解除する「免疫チェックポイント阻害薬」の仕組み
「大人の細胞」と「胎児の細胞」での増殖経路の違いとは?経路が変化する「スイッチ(遺伝子)のオン・オフ」の仕組みを知りたい?神経や心筋がほとんど増殖しない詳しい理由を知りたい?
このリボソームがどのようにタンパク質を合成するのか(翻訳の仕組み)や、30Sや50Sが足し算にならない理由について
このリボソームがどのようにタンパク質を合成するのか(翻訳の仕組み)や、30Sや50Sが足し算にならない理由について
16:33
リボソームによるタンパク質合成(翻訳)の仕組みと、沈降係数(S)が足し算にならない理由は、それぞれ「ベルトコンベア式の工場」と「空気抵抗」のイメージで理解できます。
1. リボソームがタンパク質を合成する仕組み(翻訳)
翻訳は、上下のバンズ(サブユニット)が設計図(mRNA)を挟み込み、アミノ酸を1つずつつなげていくプロセスです。リボソームの内部には Aサイト、Pサイト、Eサイト という3つの部屋があり、ここをtRNAが移動しながら作業が進みます。 [1, 2, 3]
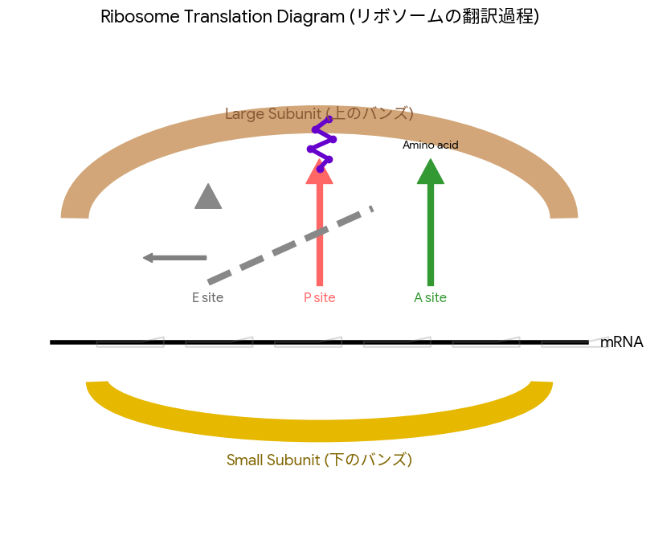
① 開始(ハンバーガーの組み立て)
- 下のバンズ(小サブユニット)が、設計図である mRNA のスタート合図(開始コドン)を見つけます。
- そこへ、最初のアミノ酸を乗せた tRNA がやってきて結合します。
- 最後に上のバンズ(大サブユニット)がガッチャンと合体し、準備が完了します。 [1]
② 伸長(アミノ酸の数珠つなぎ)
- Aサイト(受付):次に必要なアミノ酸を持ったtRNAが新しく入ってきます。
- Pサイト(加工場):これまでつながったタンパク質の鎖(ペプチド鎖)をキープしている場所です。Pサイトの鎖が、Aサイトのアミノ酸の頭へとガッチャンコと結合(ペプチジル転移)します。
- Eサイト(出口):アミノ酸を渡し終えて空っぽになったtRNAは、PサイトからEサイトへ移動し、リボソームの外へと排出されます。
- リボソームがmRNAの上を3文字分(1コドン)だけ進むことで、Aサイトが再び空き、次のアミノ酸を迎え入れます。これを繰り返して鎖がどんどん伸びていきます。 [1, 2, 3]
③ 終結(完成と解散)
- リボソームがストップの合図(終止コドン)に到達すると、伸びきったタンパク質の鎖が切り離されて完成します。
- 役目を終えた上下のバンズ(サブユニット)はバラバラに解散し、次の翻訳に向かいます。